
Biologie-écologie · Terminale
Services écosystémiques, agroécologie et potentiel évolutif
La biodiversité contribue à des processus écologiques dont les humains tirent des biens et des services. L’agroécologie mobilise ces interactions pour produire tout en limitant les perturbations. Cette diversité change au fil des générations : mutations, reproduction, sélection, dérive et échanges de gènes modifient les populations.
Explications et exemples en accès libre. Ateliers, quiz et cartes avec l’abonnement.
Prévoir mon tempsExplications et exemples en accès libre
Une première étude des explications, schémas, exemples résolus et erreurs expliquées. Les activités, productions, quiz et cartes réservés à l’abonnement ne sont pas comptés ici.
- Comprendre3705 mots d’explication et 7 schémas et 1 document
- 24 à 40 min
- Étudier les exemples et les erreurs7 cas, exemples et activités guidés
- 21 à 35 min
Étude du cours en accès libre, environ45 min à 1 h 15
Voir le calcul et le temps par étape
Le calcul suit automatiquement les explications et les tâches présentes dans le cours. Ses coefficients sont des repères de planification, pas des temps mesurés auprès d’élèves.
- Lecture active : 3705 mots, à raison de 160 à 220 mots par minute.
- Schémas : 7, avec 1 à 2 min pour lire chacun.
- Cas scientifique : 7 × 3 à 5 min.
- 5 outils de référence (1 à 2 min chacun).
- Définir un service et l’échelle de son bénéfice6 à 11 min
- Mobiliser les interactions dans un agroécosystème6 à 11 min
- Concevoir une comparaison entre parcelles6 à 10 min
- Calculer un taux de visite et décrire sa dispersion6 à 10 min
- Distinguer sélection et dérive génétique6 à 11 min
- Relier reproduction, flux de gènes, isolement et potentiel évolutif6 à 11 min
- Construire une parenté et expliquer des innovations7 à 13 min
Les sous-totaux sont arrondis à la minute, puis additionnés. La fourchette totale est élargie aux cinq minutes voisines. Les étapes ci-dessus comprennent leurs explications et exemples ; elles ne s’ajoutent pas une seconde fois au total.
Adapte ce repère à tes acquis et au soin apporté aux exercices. Les pauses, les reprises, la consultation des sources externes et les révisions suivantes s’ajoutent selon tes besoins.
Avec les ateliers, les analyses documentaires, le quiz et les cartes : environ 1 h 55 à 3 h 20, à répartir sur plusieurs séances.
Objectifs du cours
Ce que tu vas savoir faire
- Relier un processus écologique à un service, un bénéficiaire et une échelle.
- Expliquer des mécanismes agroécologiques et leurs effets sur plusieurs services.
- Distinguer visite florale, pollinisation, fécondation, fructification et production.
- Construire une comparaison et calculer moyenne et dispersion sans inventer de groupes.
- Expliquer sélection et dérive avec variations héréditaires et valeur sélective.
- Relier reproduction, flux de gènes, isolement et potentiel évolutif.
- Construire un arbre à partir de caractères et lire des parentés sans échelle de progrès.
- Distinguer transmission verticale, transfert horizontal et endosymbiose.
Repère visuel Biologie-écologie
Des processus actuels à une histoire évolutive
Un bénéfice, un indicateur et un mécanisme d’évolution ne répondent pas à la même question.
- 1RelierAssocie organismes, processus, bénéficiaires et échelles.
- 2MesurerChoisis un indicateur et définis la comparaison.
- 3ExpliquerDistingue variation héréditaire, sélection, dérive et flux.
- 4ReconstruireUtilise les caractères pour construire une hypothèse de parenté.
La biodiversité contribue aux services présents et porte des possibilités d’évolution, sans garantir une adaptation future.
Étape du cours · 6 à 11 min
Définir un service et l’échelle de son bénéfice
Un service écosystémique n’est pas simplement un être vivant, un paysage ou une fonction écologique. C’est un bénéfice associé à un processus écologique, pour des bénéficiaires et à une échelle annoncés. La décomposition de la litière et la disponibilité d’éléments minéraux sont des processus ou fonctions écologiques ; ils deviennent un service lorsqu’ils contribuent à un bénéfice humain documenté, par exemple une production agricole pour un exploitant dans une parcelle et une période précises. La distinction oblige à nommer ce qui agit, ce qui est reçu et le périmètre où la relation est étudiée.
On parle de biens lorsque le bénéfice est une ressource prélevée, telle qu’une récolte, du bois ou de l’eau selon les conditions d’accès. Les services de régulation correspondent à des processus qui contribuent, par exemple, à la pollinisation, au contrôle biologique de certains ravageurs, à la limitation de l’érosion ou à la régulation de l’eau. Les services culturels renvoient à des bénéfices non matériels : découverte, attachement à un paysage, activités de loisir, savoirs ou pratiques. Une même composante du milieu peut être liée à plusieurs bénéfices, sans que ceux-ci soient identiques ni garantis.
La valeur d’option désigne l’importance accordée au maintien de possibilités futures, même lorsqu’un usage précis n’est pas encore connu ou exercé. Elle ne constitue pas automatiquement un quatrième type de service : elle exprime une manière d’évaluer l’intérêt de conserver des possibilités. Il faut donc éviter d’écrire qu’une espèce possède une valeur d’option parce qu’elle est rare, ou qu’un service est démontré parce qu’un prix lui est attribué.
Mettre un service en discussion peut nécessiter des unités monétaires, mais la monétarisation n’épuise pas les raisons de juger une situation. Elle peut rendre visible un coût ou un arbitrage, tandis que des usages, des droits, des incertitudes, des inégalités de répartition ou un attachement culturel ne se réduisent pas forcément à ce calcul. Une comparaison rigoureuse annonce les critères retenus et ce qu’ils ne mesurent pas, au lieu de transformer un chiffre en verdict universel.
Dans un agroécosystème, les parcelles cultivées, le sol, les plantes spontanées, les haies, les organismes et les pratiques humaines forment un système étudié. Une visite d’insecte sur une fleur décrit une interaction à une fenêtre de temps donnée. Elle ne prouve pas à elle seule un transfert de pollen, une fécondation, une fructification ou un rendement. L’échelle de la mesure doit donc rester cohérente avec la conclusion : un indicateur local ne décrit pas automatiquement le fonctionnement de tout un paysage.
Pour poser un problème, commence par écrire quatre éléments : le processus observé, le bénéfice envisagé, les bénéficiaires et l’échelle spatiale et temporelle. Demande ensuite quelle observation manque encore pour passer d’une hypothèse à une conclusion. Cette méthode évite de confondre une fonction avec son bénéfice, une préférence avec une mesure, ou une observation ponctuelle avec une propriété durable de tous les milieux comparables.
Voir pour comprendre
Nommer ce qu’un dossier permet d’appeler service
La grille sépare processus, bénéfice, bénéficiaires et manière d’évaluer une possibilité future.
| Objet | Exemple | Ce qu’il faut encore préciser | Conclusion interdite |
|---|---|---|---|
| Processus | Visite d’une fleur | Période, fleur et observation | C’est déjà un rendement |
| Service de régulation | Contribution à la pollinisation | Bénéfice et indicateur approprié | Toute visite est fécondation |
| Bien | Ressource utilisée | Accès et bénéficiaires | Tout élément naturel est un bien |
| Valeur d’option | Possibilités futures maintenues | Ce qui est évalué et pour qui | Un quatrième service automatique |
Lis le schéma. Lis chaque ligne de gauche à droite puis vérifie la preuve disponible avant de conclure.
La présence d’un organisme ou d’un paysage ne suffit pas : il faut relier un processus à un bénéfice et à des bénéficiaires à l’échelle annoncée.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionUn dossier sur un verger et une haie permet-il déjà d’affirmer qu’un service de pollinisation est assuré ?
Observations
- Le 18 mai 2026, le document didactique hypothétique indique 24 visites sur 100 fleurs de pommier pendant 10 minutes, près d’une haie voisine.
- Sur 30 stigmates examinés dans ce même dossier, 18 portent du pollen ; 14 fruits sont ensuite comptés parmi 30 fleurs étiquetées, sans groupe de comparaison.
- La même haie est aussi présentée comme un élément de paysage apprécié par des promeneurs, sans enquête sur leurs usages ni leurs valeurs.
- Aucune donnée ne compare des fleurs rendues inaccessibles aux visiteurs à des fleurs accessibles, et aucun rendement de parcelle n’est fourni.
Hypothèses
- Les visites observées peuvent contribuer au transfert de pollen, mais elles ne suffisent pas à établir la fécondation ni la production finale.
- La haie peut être associée à un bénéfice culturel pour certains usagers, à condition de documenter cet usage plutôt que de le supposer.
- Le maintien de la haie peut aussi être discuté au titre de possibilités futures, sans transformer cette valeur d’option en service mesuré.
Preuves à fournir
- Le relevé documente 24 visites pour 100 fleurs pendant 10 minutes, le 18 mai 2026, près de la haie décrite.
- Les 18 stigmates portant du pollen et les 14 fruits comptés sont des indicateurs ultérieurs, mais les autres conditions ne sont pas détaillées.
- L’absence de comparaison des fleurs accessibles et inaccessibles empêche d’isoler la contribution des visiteurs.
- L’évocation de promeneurs signale une piste culturelle, mais aucune réponse, fréquence d’usage ou critère d’évaluation n’est fournie.
Analyse guidée
Le 18 mai 2026, le dossier didactique hypothétique compte 24 visites sur 100 fleurs de pommier pendant 10 minutes. Il fournit aussi deux observations ultérieures : du pollen sur 18 des 30 stigmates examinés et 14 fruits parmi 30 fleurs étiquetées. Ces trois indicateurs sont concrets, mais ils ne mesurent pas le même maillon. La présence d’une haie peut soutenir une hypothèse sur les visiteurs ; elle ne prouve pas qu’elle est la cause du pollen ou des fruits, car aucune fleur sans accès aux visiteurs ni aucun autre contexte comparable ne sont étudiés. La haie peut aussi faire l’objet d’une question culturelle, mais il faudrait un document sur les usages ou les perceptions des personnes concernées. La conclusion correcte est donc une hypothèse structurée, non l’affirmation que tous les services sont assurés.
Diagnostic d’erreur
Indice observéÉcrire : « La haie rend un service de pollinisation, culturel et économique parce qu’elle est présente près du verger. »
CauseLa présence d’un élément du paysage est confondue avec la mesure d’un processus, d’un bénéfice et de sa valeur pour des bénéficiaires précis.
Correction expliquée
Nomme chaque relation et sa preuve. Ici, 24 visites sont observées, 18 stigmates sur 30 portent du pollen et 14 fruits sur 30 fleurs étiquetées sont comptés. Ce qui manque est l’attribution de ces résultats aux visiteurs ou à la haie, car aucune comparaison pertinente n’est fournie ; les usages culturels demandent aussi leur propre document.
Étape du cours · 6 à 11 min
Mobiliser les interactions dans un agroécosystème
Un agroécosystème est un système où la production agricole s’inscrit dans des interactions entre organismes, sols, eau, climat, aménagements et décisions humaines. Une parcelle ne fonctionne donc pas isolément du paysage qui l’entoure. Décrire l’agroécosystème ne revient pas à attribuer toute variation d’une récolte à la biodiversité : il faut encore préciser quelles interactions sont examinées, sur quelle période et avec quel indicateur.
L’agroécologie vise à minimiser la fréquence et l’intensité des perturbations dans les systèmes de production, tout en examinant leurs compromis. Une couverture du sol peut amortir l’impact des pluies, limiter l’érosion et maintenir des conditions d’habitat pour certains auxiliaires. Si leur présence, leur période d’activité et celle des ravageurs concordent, une prédation est possible et les dommages peuvent être réduits. Ce mécanisme ne promet ni le même résultat dans toutes les cultures ni l’absence d’autres compromis pour la production et les autres services.
Une haie peut former un habitat, offrir des ressources, filtrer certaines conditions locales ou constituer une zone de passage pour certains organismes. À sa lisière, l’écotone est une transition : il ne possède pas par nature une fonction unique. La structure d’une haie, sa continuité, sa saisonnalité, son entretien, la matrice agricole et l’espèce considérée changent ce qu’elle rend possible. Une haie peut être franchissable pour un organisme et peu utilisable par un autre.
On parle de connectivité fonctionnelle lorsque la configuration du paysage permet effectivement à des organismes ou à des propagules de se déplacer, de survivre et, selon le cas, de se reproduire. Elle n’est pas déduite d’une ligne verte sur une carte. Une continuité structurale peut constituer une hypothèse de passage ; des observations de déplacement, de présence, de dispersion ou d’échanges sont nécessaires pour en discuter la fonction, toujours pour l’organisme et l’échelle étudiés.
La synthèse mondiale de Dainese et al. (2019) rassemble 89 études et 1 475 sites sur la pollinisation, le contrôle biologique et la production végétale. Les auteurs y distinguent richesse, abondance et dominance des organismes concernés ; leurs modèles associent la richesse des pollinisateurs ou ennemis naturels à des services, en plus de l’abondance et de la dominance. Les méthodes, cultures, paysages et usages d’insecticides diffèrent entre études. Ce résultat appuie une relation étudiée à grande échelle, mais ne permet pas de transformer une haie particulière en cause unique, ni une visite florale locale en rendement démontré.
Pour relier une interaction à un bénéfice, conserve la chaîne complète. Une visite sur une fleur peut être suivie ou non d’un dépôt de pollen ; la pollinisation peut ou non contribuer à la fécondation ; celle-ci peut se traduire différemment en fruits, graines ou rendement selon la plante et les autres conditions. De même, la présence d’un auxiliaire n’est pas directement une mesure des dégâts évités. Séparer les maillons aide à choisir l’indicateur adapté et à ne pas confondre un mécanisme plausible avec son effet final.
Voir pour comprendre
De la structure du paysage à l’indicateur mesuré
Une même chaîne comporte des conditions, des mécanismes possibles et des effets qui demandent des indicateurs différents.
| Maillon | Ce qu’il peut indiquer | Mesure ou preuve utile | Ne démontre pas seul |
|---|---|---|---|
| Haie ou écotone | Habitat, ressource, filtre ou passage possible | Structure, saisonnalité et contexte | Une fonction identique pour toutes les espèces |
| Continuité | Hypothèse de passage | Déplacement, survie ou reproduction | Connectivité fonctionnelle établie |
| Visite florale | Interaction observée | Fenêtre et ressource standardisées | Dépôt de pollen ou rendement |
| Fructification ou production | Effet ultérieur mesuré | Comparaison et autres conditions | La seule cause de l’effet |
Lis le schéma. Repère l’objet observé dans chaque ligne ; ne saute pas d’une condition paysagère à une production sans mesure intermédiaire.
Une continuité structurale peut soutenir une hypothèse ; elle ne suffit pas à démontrer la connectivité fonctionnelle, la pollinisation ou le rendement.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionQue permet de conclure un dossier qui compare la structure de deux haies et des visites florales dans des parcelles voisines ?
Observations
- Dans un dossier public hypothétique, la parcelle A est bordée d’une haie continue et la parcelle B d’une bordure discontinue.
- Le 18 mai 2026, sur la même espèce de fleur et pendant 10 minutes, A compte 24 visites pour 100 fleurs et B 16 visites pour 100 fleurs.
- La comparaison descriptive donne donc un écart de +8 visites pour 100 fleurs et 10 minutes en faveur de A.
- La date de floraison locale, la météo détaillée, la taille des parcelles et les pratiques de traitement ne sont pas renseignées dans le document ; il n’y a ni répétition de parcelle ni autre jour de mesure.
- Aucun dépôt de pollen, fruit formé, graine ni récolte n’est mesuré dans le dossier.
Hypothèses
- La différence de structure des bordures peut être associée à des ressources ou conditions de déplacement différentes pour certains visiteurs.
- Des différences de floraison, de météo, de parcelle ou de pratiques peuvent aussi contribuer à l’écart de visites observé.
- Une continuité paysagère peut être une condition de connectivité fonctionnelle, qui reste à tester pour les organismes visés.
Preuves à fournir
- La structure contrastée des deux bordures est décrite et les fenêtres de comptage sont comparables le même jour dans ce dossier hypothétique.
- L’indicateur fourni est le nombre de visites sur fleurs, pas le déplacement entre habitats ni la production végétale.
- Des variables susceptibles d’agir sur les visites ne sont pas documentées, ce qui limite l’attribution causale.
- La synthèse de Dainese et al. montre que richesse, abondance et dominance ne se confondent pas dans l’étude des services.
Analyse guidée
Les visites sur fleurs constituent ici l’indicateur effectivement observé. Le 18 mai 2026, A compte 24 visites et B 16 pour 100 fleurs pendant 10 minutes : l’écart descriptif est donc de +8 en faveur de A. La même fleur et la même durée rendent cette comparaison plus lisible, mais une seule parcelle par configuration et un seul jour ne suffisent pas à attribuer l’écart à la haie. Celle-ci fournit une hypothèse de mécanisme, par exemple des ressources ou un passage plus favorable pour certains organismes. Ni déplacement entre habitats ni reproduction ne sont mesurés, et la floraison, la météo, la taille des parcelles et les pratiques restent inconnues. Enfin, le dossier ne mesure ni dépôt de pollen ni fruits ni rendement. La conclusion doit donc décrire une association descriptive compatible avec plusieurs explications.
Diagnostic d’erreur
Indice observéConclure que la haie A augmente le rendement parce que davantage de visites ont été comptées près d’elle.
CauseQuatre étapes sont confondues : structure de la haie, visites, pollinisation et production, alors que le dossier ne mesure que l’une d’elles.
Correction expliquée
Conserve l’indicateur exact : une différence de visites dans des fenêtres définies. Recherche ensuite les facteurs de confusion et mesure séparément dépôt de pollen, fructification ou production avant toute conclusion sur le rendement.
Étape du cours · 6 à 10 min
Concevoir une comparaison entre parcelles
Une comparaison prospective annonce avant l’observation ce qui sera comparé, ce qui sera mesuré et ce qui ferait évoluer l’interprétation. Elle commence par une question précise : par exemple, dans des parcelles définies, une caractéristique de bordure est-elle associée à un indicateur de visites florales pendant une période de floraison donnée ? Cette question n’affirme pas déjà la cause. Elle rend au contraire possible une hypothèse réfutable, c’est-à-dire une proposition que des résultats pourraient contredire.
Il faut distinguer l’unité étudiée de la fenêtre dans laquelle elle est observée. Si la comparaison porte sur des parcelles, la parcelle est l’unité dont les caractéristiques sont comparées. Plusieurs créneaux de dix minutes dans la même parcelle enrichissent l’observation de cette parcelle, mais ne créent pas plusieurs parcelles indépendantes. Les traiter comme des répétitions indépendantes masquerait la variabilité réelle entre parcelles : c’est une pseudo-réplication.
Avant la mesure, définis la réponse sans ambiguïté. « Visites florales » peut désigner un nombre de contacts observés par fenêtre, sur une espèce florale et dans des conditions précises. Ce choix ne mesure ni le pollen déposé ni la fécondation, la fructification ou le rendement. Ces objets peuvent être étudiés, mais avec des indicateurs propres et un lien causal qui reste à examiner. Changer d’indicateur au moment de conclure rend le protocole illisible.
Une différence entre parcelles peut venir de la bordure étudiée, mais aussi de la date de floraison, de la météo, de la variété cultivée, de la taille de parcelle, du paysage alentour ou de pratiques agricoles. Ces facteurs sont des confusions possibles lorsqu’ils varient avec le facteur comparé. On peut les contrôler par la sélection de parcelles comparables, les documenter pour les interpréter, ou organiser des groupes appariés. Les ignorer ne les fait pas disparaître.
Une comparaison plus solide prévoit plusieurs parcelles par condition, suffisamment séparées pour que les mêmes organismes ou les mêmes décisions locales ne dominent pas tous les relevés. Elle répartit les observations sur des périodes comparables, consigne les conditions et conserve les valeurs observées, y compris lorsqu’elles ne vont pas dans le sens attendu. Des fenêtres répétées par parcelle améliorent l’estimation de cette parcelle ; les parcelles indépendantes soutiennent la comparaison entre conditions.
La conclusion doit reprendre exactement la force des données. Si les parcelles diffèrent encore sur plusieurs facteurs, on conclut à une association compatible avec plusieurs mécanismes. Si un suivi relie successivement visites, pollen, fécondation et production sous des comparaisons adéquates, la chaîne est mieux étayée sans devenir automatiquement universelle. Une bonne analyse indique la prochaine preuve utile plutôt que de remplacer l’incertitude par une certitude de vocabulaire.
Voir pour comprendre
Construire une comparaison loyale entre parcelles
Le protocole distingue le facteur comparé, l’unité indépendante, les sous-observations et les facteurs de confusion.
| Élément | Dans le plan | Rôle | Erreur à éviter |
|---|---|---|---|
| Facteur comparé | Configuration de bordure | Définie avant les relevés | L’appeler cause avant comparaison |
| Unité | Parcelle | Porte la comparaison entre conditions | La remplacer par un créneau |
| Sous-observation | Fenêtre sur fleurs | Caractérise une parcelle | La compter comme parcelle indépendante |
| Facteur de confusion | Météo ou floraison | À contrôler ou consigner | Le faire disparaître de l’interprétation |
Lis le schéma. Identifie d’abord l’unité de comparaison. Vérifie ensuite ce que chaque fenêtre apporte et ce que la conclusion peut réellement porter.
Des créneaux répétés caractérisent une parcelle ; ils ne remplacent pas des parcelles indépendantes et ne transforment pas des visites en rendement mesuré.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionQuel plan permet de comparer loyalement deux configurations de bordure et l’indicateur de visites florales ?
Observations
- Le plan prospectif construit pour l’exercice distingue six parcelles : trois à bordure continue et trois à bordure discontinue, classées avant les relevés.
- Dans chaque parcelle, trois fenêtres de même durée sont prévues sur la même espèce florale pendant une phase de floraison annoncée.
- Les prévisions demandent de consigner météo, date, variété cultivée, taille de parcelle et éléments du paysage voisin.
- Le plan ne prévoit ni traitement appliqué aux insectes, ni modification d’habitat, ni prélèvement : il compare des configurations décrites.
Hypothèses
- Après prise en compte des conditions consignées, les parcelles de configurations différentes peuvent présenter des niveaux de visites différents.
- Un écart éventuel peut aussi rester lié à une floraison, une météo, une variété ou une configuration paysagère différente.
- Les trois fenêtres d’une parcelle servent à caractériser cette parcelle ; elles ne sont pas six ou dix-huit parcelles indépendantes.
Preuves à fournir
- La configuration de bordure est définie avant les relevés et l’indicateur est le même dans toutes les parcelles.
- Les fenêtres ont une durée et une ressource florale comparables, ce qui réduit une partie de la variation de mesure.
- Les variables susceptibles de confondre l’interprétation sont listées et conservées pour l’analyse critique.
- Les parcelles, et non les fenêtres seules, constituent les unités à comparer pour discuter l’effet d’une configuration.
Analyse guidée
Le facteur comparé est la configuration de bordure définie pour chaque parcelle avant les relevés. L’indicateur est le nombre de visites florales dans des fenêtres de durée identique sur une même ressource. Les trois fenêtres améliorent l’observation de chaque parcelle, mais l’unité de comparaison reste la parcelle : les considérer comme dix-huit répétitions indépendantes exagérerait l’information disponible. La météo, la date, la variété, la taille et le paysage sont consignés car ils peuvent produire une différence sans que la bordure en soit la seule cause. Si un écart apparaît, la conclusion raisonnable est une association dans ce plan prospectif ; il faudrait des éléments supplémentaires pour attribuer une causalité unique ou pour parler de rendement.
Diagnostic d’erreur
Indice observéComparer les dix-huit fenêtres comme si elles provenaient de dix-huit parcelles et conclure que la bordure est la cause du rendement.
CauseLes sous-observations sont confondues avec des unités indépendantes, et l’indicateur de visites est remplacé par un indicateur de production non mesuré.
Correction expliquée
Groupe les fenêtres par parcelle, annonce la parcelle comme unité de comparaison et conclus sur les visites observées. Pour aller vers la production, mesure séparément les maillons manquants et contrôle les explications concurrentes.
Étape du cours · 6 à 10 min
Calculer un taux de visite et décrire sa dispersion
Compter des visites ne suffit pas à comparer deux observations : une personne qui observe plus de fleurs ou plus longtemps a davantage d’occasions d’en compter. On rapporte donc le nombre de visites à une quantité de fleurs et à une durée communes. Le taux choisi ici s’exprime en visites pour 100 fleurs et pour 10 minutes. Il décrit l’activité enregistrée pendant une fenêtre, et non le nombre d’espèces présentes ou la réussite de la pollinisation.
Exemple synthétique : 18 visites sont comptées sur 60 fleurs pendant 15 minutes. Le calcul est 18 × (100 / 60) × (10 / 15) = 20 visites/100 fleurs/10 min. On agrandit le dénominateur floral de référence et on raccourcit la durée de référence. Cette opération arithmétique met les unités au même format ; elle ne rend pas identiques les espèces végétales, la météo ou les horaires. Elle n’annonce pas non plus exactement vingt visites lors d’une prochaine observation.
Un autre exercice synthétique fournit quatre taux déjà standardisés : 4, 6, 8 et 10 visites/100 fleurs/10 min. Leur somme vaut 28 et leur moyenne 28 / 4 = 7 dans la même unité. Chaque fenêtre a ici le même poids dans la moyenne des quatre taux. Si l’on voulait calculer un taux global à partir d’observations de durées ou de nombres de fleurs différents, il faudrait retrouver les comptages et leurs dénominateurs, puis préciser la pondération.
La moyenne ne dit pas à quel point les observations sont dispersées. Les écarts à 7 sont −3, −1, +1 et +3 ; la somme de leurs carrés vaut 20. Avec la convention de l’écart-type d’échantillon, on divise cette somme par n − 1, soit 3, puis on prend la racine carrée : s = √(20 / 3), environ 2,582 visites/100 fleurs/10 min. Le diviseur et les arrondis sont annoncés. La racine carrée restitue l’unité initiale.
Les points individuels permettent de lire chaque taux, tandis qu’une ligne de moyenne donne un repère commun. L’axe horizontal porte des identifiants de fenêtres : les relier ferait croire à une trajectoire temporelle que le dossier ne fournit pas. L’étendue, différence entre maximum et minimum, vaut ici 10 − 4 = 6. Elle ne remplace pas l’écart-type, qui tient compte de tous les écarts à la moyenne. Aucun de ces nombres ne classe les fenêtres en modalités expérimentales.
La dispersion décrit le jeu fourni. Elle peut réunir des différences d’activité des visiteurs, des conditions d’observation et des variations de comptage ; elle ne choisit pas leur cause. L’écart-type n’est ni une marge d’erreur causale ni un intervalle de confiance. Pour tester l’effet d’une haie, on revient au plan comparatif et aux métadonnées. Pour étudier le service de pollinisation, on ajoute des indicateurs adaptés, comme le dépôt de pollen compatible et la reproduction des plantes étudiées.
Voir pour comprendre
Du comptage à une conclusion précise
Deux exercices synthétiques distincts : standardiser un comptage, puis résumer quatre taux.
| Question | Calcul | Résultat | Ce que l’on décrit |
|---|---|---|---|
| 18 visites, 60 fleurs, 15 min | 18 × 100/60 × 10/15 | 20 visites/100 fleurs/10 min | Un taux standardisé |
| Taux : 4 ; 6 ; 8 ; 10 | 28/4 | 7 visites/100 fleurs/10 min | Une moyenne de fenêtres |
| Somme des carrés des écarts : 20 | √(20/3) | 2,582 visites/100 fleurs/10 min | La dispersion, avec diviseur n − 1 |
| Réussite de la pollinisation | Mesure spécifique nécessaire | Non fournie dans ce jeu | Un autre niveau de preuve |
Lis le schéma. Repère le dénominateur et l’unité avant d’interpréter le résultat.
Une statistique décrit les observations auxquelles elle s’applique.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionQue résument les quatre taux de visite et que reste-t-il à mesurer pour parler d’un service ?
Observations
- Données synthétiques : quatre fenêtres ont des taux de 4, 6, 8 et 10 visites/100 fleurs/10 min.
- Chaque fenêtre a le même poids dans le calcul proposé ; aucun groupe de haies ni ordre temporel n’est défini.
- Exemple de standardisation distinct : 18 visites sur 60 fleurs durant 15 minutes.
- Le dossier ne fournit ni dépôt de pollen, ni nombre de fruits, ni rendement agricole.
Hypothèses
- L’activité des visiteurs peut varier entre fenêtres d’observation.
- Des conditions ou des différences de comptage peuvent aussi contribuer à la dispersion.
Preuves à fournir
- La moyenne arithmétique des quatre taux vaut 7 dans leur unité.
- La somme des carrés des écarts vaut 20 ; l’écart-type d’échantillon vaut √(20/3).
- Le comptage distinct donne 18 × (100/60) × (10/15) = 20 visites/100 fleurs/10 min.
- Aucune observation fournie ne mesure la fécondation ou le service agricole final.
Analyse guidée
On conserve les quatre taux et leur unité. La moyenne est 28/4 = 7 ; l’écart-type d’échantillon est √(20/3), environ 2,582 dans la même unité, et l’étendue vaut 6. La standardisation de l’autre comptage donne un taux de 20. Ces calculs décrivent une activité de visite. Ils ne testent pas un effet de haie, car les modalités ne sont pas définies, et ne mesurent pas le succès reproducteur des plantes. Une comparaison utile doit préciser ses unités indépendantes et ajouter les indicateurs qui répondent au processus étudié.
Diagnostic d’erreur
Indice observéTransformer une moyenne de visites en quantité de fruits produite ou en effet démontré des haies.
CauseLe calcul est exact, mais l’indicateur change de signification au moment de conclure.
Correction expliquée
Nomme ce qui a été compté, conserve l’unité et demande un indicateur de reproduction ainsi qu’un plan comparatif pour tester ces autres questions.
Étape du cours · 6 à 11 min
Distinguer sélection et dérive génétique
Une population présente un polymorphisme phénotypique lorsque plusieurs formes observables coexistent. Il faut ensuite demander quelle part de ces différences est héréditaire : un phénotype modifié par le milieu n’est pas automatiquement un variant génétique transmissible. Le pool génétique rassemble les allèles hérités et les nouveaux allèles issus de mutations dans une population. Une diversité génétique ne garantit ni un résultat utile ni une adaptation immédiate : elle rend disponibles des différences transmissibles sur lesquelles des processus évolutifs peuvent agir.
Une mutation modifie une séquence d’ADN sans apparaître parce qu’un organisme en aurait besoin. Le milieu ne fabrique donc pas, à la demande, l’allèle qui serait avantageux ; il change plutôt les conséquences de variants déjà présents ou apparus sans direction préalable. Le brassage associé à la reproduction sexuée réorganise des allèles déjà présents chez les parents et produit de nouvelles combinaisons de génotypes. La mutation peut introduire un nouvel allèle. Une modification acquise par le corps au cours de la vie ne devient pas pour autant un variant transmis : il faut préciser l’héritabilité et la voie de reproduction.
La sélection naturelle correspond à une différence de contribution à la génération suivante entre génotypes dans un contexte donné. La valeur sélective est relative : elle dépend des conditions, des autres variants présents et de la descendance effectivement produite. Dire qu’un allèle est « meilleur » sans préciser la population et le milieu masque ce raisonnement. Si les porteurs d’un variant laissent en moyenne davantage de descendants dans les conditions étudiées, la fréquence de ce variant peut augmenter. Ce changement de fréquence ne dit pas qu’un individu a choisi de s’adapter.
L’antibiorésistance permet de suivre cette distinction dans un document scientifique, sans réaliser de culture. Des variants résistants peuvent être présents ou apparaître sans direction préalable ; une exposition peut alors modifier leur contribution relative à la génération suivante. La conclusion doit conserver la séparation entre la source de variation et le tri des variants. Elle ne permet jamais d’en déduire qu’un antibiotique aurait fabriqué la mutation nécessaire, ni de fournir une conduite de traitement.
La dérive génétique est un autre mécanisme : par hasard, les individus qui transmettent leurs allèles ne constituent pas toujours un échantillon représentatif de la population initiale. Son effet est plus visible lorsque l’effectif reproducteur est faible. Un effet fondateur peut se produire quand un petit groupe établit une nouvelle population ; un goulot d’étranglement lorsqu’un événement réduit fortement les reproducteurs. Dans les deux cas, une fréquence peut changer sans que l’allèle devenu fréquent procure un avantage dans le milieu.
Considère un modèle de quatre individus diploïdes : AA, Aa, Aa et aa. Il y a huit copies d’allèles, dont quatre A et quatre a : f(A) = 4/8 = 0,50. Si, sans sélection dans le modèle, une nouvelle population est fondée par AA et Aa, elle contient trois A sur quatre copies ; avec Aa et aa, elle contient une A sur quatre. Ces deux tirages illustrent une dérive possible, pas une prédiction sur une population réelle. Pour conclure à une sélection, il faudrait aussi comparer la descendance et les conditions qui départagent les génotypes.
Voir pour comprendre
Distinguer origine de variation et changement de fréquence
Modèles de raisonnement : aucun résultat n’est généralisé hors de son contexte.
| Processus | Ce qui varie | Mécanisme | Conclusion permise |
|---|---|---|---|
| Mutation | Séquence d’ADN | Nouvel allèle non dirigé par le besoin | Source possible de variation |
| Brassage sexué | Combinaisons d’allèles | Réunion et recombinaison d’allèles parentaux | Nouveaux génotypes, pas forcément nouvel allèle |
| Sélection | Fréquence des variants | Différence de contribution selon le contexte | Valeur sélective relative à démontrer |
| Dérive | Fréquence des variants | Échantillonnage aléatoire, fort aux petits effectifs | Pas d’avantage adaptatif déduit |
Lis le schéma. Lis d’abord ce qui crée ou réorganise la variation, puis ce qui explique le changement de fréquence.
Une fréquence peut changer par sélection ou par dérive ; la variation n’est pas créée en réponse à un besoin.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionQue permet d’établir l’étude documentaire de Gullberg et collègues sur l’enrichissement de bactéries résistantes, et que ne permet-elle pas d’affirmer sur l’origine des mutations ?
Observations
- Gullberg et collègues comparent en laboratoire des souches sensibles et résistantes d’Escherichia coli ou de Salmonella.
- Les compétitions contrôlées suivent le rapport entre variants sensibles et résistants.
- Dans des conditions d’exposition faibles étudiées, les variants résistants sont enrichis relativement aux sensibles, y compris lorsqu’ils sont initialement rares.
- L’étude mesure des fréquences dans des populations bactériennes définies, non une personne, un traitement ou tous les environnements.
Hypothèses
- L’exposition déclenche spécifiquement, parce qu’elle est nécessaire, la mutation de résistance attendue.
- Des variants résistants préexistants ou apparus sans direction sont avantagés relativement aux variants sensibles dans les conditions expérimentales.
Preuves à fournir
- Une mutation apparue parce qu’elle répondrait au besoin devrait être distinguée expérimentalement de la sélection d’une variation déjà disponible ; le changement de fréquence seul ne prouve pas cette direction.
- L’enrichissement comparatif des souches résistantes dans le dispositif soutient une différence de valeur sélective relative dans les conditions étudiées.
- Les contrôles des marqueurs et la comparaison de génotypes proches limitent une explication par le seul comptage, sans transformer l’étude en preuve universelle.
- La comparaison d’autres génotypes, milieux et générations serait nécessaire pour étendre le résultat hors du cadre expérimental.
Analyse guidée
Le document compare des variants et montre qu’un variant résistant peut devenir relativement plus fréquent lorsque les conditions diminuent davantage la contribution des variants sensibles. Cela décrit une sélection naturelle : les fréquences changent par contributions relatives différentes à la population suivante. Le résultat n’attribue pas aux bactéries une mutation intentionnelle. La conclusion reste bornée aux compétitions et conditions décrites ; elle ne prescrit aucun traitement et ne prédit pas une infection particulière.
Diagnostic d’erreur
Indice observéÉcrire que l’antibiotique fabrique la mutation de résistance dont la bactérie a besoin.
CauseLe raisonnement confond l’apparition non dirigée de variations avec la sélection, qui modifie leur fréquence relative après comparaison de descendants.
Correction expliquée
Sépare deux phrases : des variants transmissibles existent ou apparaissent sans projet ; dans des conditions définies, certains contribuent davantage à la génération suivante. Puis indique ce que le document mesure réellement.
Étape du cours · 6 à 11 min
Relier reproduction, flux de gènes, isolement et potentiel évolutif
Le flux de gènes est le passage d’allèles entre populations. Il demande davantage qu’un déplacement visible : un individu, un gamète ou un propagule doit contribuer à la reproduction de la population d’arrivée. Une haie peut offrir une structure favorable à certains déplacements, mais elle ne prouve ni une reproduction ni une transmission d’allèles. Pour établir un flux de gènes, il faut des indices adaptés, par exemple une contribution reproductive ou une comparaison génétique interprétée avec prudence.
Un isolement géographique sépare des espaces ; un isolement reproducteur limite ou empêche l’échange génétique entre populations. Le premier peut favoriser le second, mais ne l’établit pas automatiquement. Deux groupes séparés par une rivière peuvent encore échanger des gènes si l’espèce la franchit et se reproduit ; des groupes voisins peuvent être isolés reproductivement par une incompatibilité, une période de reproduction ou un comportement. La spéciation devient une hypothèse solide lorsque la divergence s’accompagne d’un isolement reproducteur durable, pas au seul constat d’une distance ou d’une différence d’apparence.
La reproduction sexuée associe des génomes de parents et, par brassage, peut réunir dans une même descendance des combinaisons d’allèles qui n’étaient pas portées ensemble. Dans un milieu changeant, cette recombinaison peut accroître la variété des génotypes soumis aux conditions nouvelles ; c’est un mécanisme positif possible, pas une garantie d’adaptation. La reproduction asexuée transmet, sauf mutation, une descendance génétiquement très proche du parent. Ces modes n’imposent pas un classement de valeur : leur effet dépend du rythme des mutations, de l’effectif, du milieu, de la dispersion et de la reproduction effective.
Les activités humaines peuvent modifier la diversité génétique des populations cultivées. La sélection variétale choisit certains caractères pour multiplier des variétés ; elle peut conserver, combiner ou réduire la diversité selon les populations maintenues et les critères retenus. Une érosion génétique désigne une perte de diversité disponible, pas le jugement qu’une variété est mauvaise. Décrire cette situation demande de nommer l’échelle : diversité au sein d’une variété, entre variétés d’une culture, ou dans les apparentés sauvages ne répond pas à la même question.
L’éco-évolution relie réciproquement écologie et évolution. Par exemple, des variants héréditaires de calendrier d’émergence chez un insecte peuvent modifier les visites reçues par une plante ; si ces visites changent la reproduction de la plante, les variants de floraison de celle-ci peuvent à leur tour modifier l’accès de l’insecte aux ressources. Les interactions et les fréquences peuvent donc se répondre au fil des générations. Ce mécanisme est conditionnel : il faut vérifier l’héritabilité, les décalages de phénologie, les contributions reproductives et la réciprocité des effets. Observer deux calendriers différents ne suffit pas à conclure à une coévolution achevée.
Une décision prudente sur des cultures, des haies ou des corridors n’est donc pas une promesse de résultat évolutif. Elle explicite le but, les populations concernées, les indicateurs et le suivi. Elle distingue structure paysagère, déplacement, reproduction et flux de gènes. Conserver plusieurs sources de diversité peut élargir les variantes disponibles, mais ne garantit ni adaptation, ni rendement, ni résistance dans tous les contextes. Les décisions de gestion réelles relèvent des acteurs compétents et d’un diagnostic local qui dépasse ce dossier.
Voir pour comprendre
De la structure du paysage à l’évolution : les preuves à ne pas confondre
Chaîne conditionnelle : chaque étape exige son propre indice.
| Objet observé | Ce qu’il peut suggérer | Preuve nécessaire | Ce qui reste ouvert |
|---|---|---|---|
| Haie ou corridor | Possibilité de déplacement pour certaines espèces | Observation de franchissement adaptée | Déplacement réel et espèces concernées |
| Déplacement | Contact entre populations | Reproduction et descendants contribuant à la population | Flux de gènes |
| Séparation géographique | Réduction possible des échanges | Mesure du flux de gènes et de la dispersion | Isolement reproducteur |
| Isolement reproducteur durable | Divergence de populations | Convergence de plusieurs indices de parenté et reproduction | Trajectoire de spéciation |
Lis le schéma. Lis les flèches comme des questions de preuve, non comme une suite automatique.
Un corridor peut faciliter des contacts ; seul un échange reproductif établit un flux de gènes.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionQue montre l’exemple documentaire des deux sous-espèces de chouettes tachetées présenté par OpenStax sur le rôle possible d’une séparation géographique dans la divergence ?
Observations
- OpenStax présente deux sous-espèces de chouettes tachetées, l’une au nord-ouest des États-Unis et l’autre au Mexique et dans le sud-ouest des États-Unis.
- Le document décrit une séparation géographique ainsi que des différences génétiques et phénotypiques entre ces groupes proches.
- Les régions occupées ne présentent pas les mêmes climats, ressources, organismes ni comportements de chasse décrits dans l’exemple.
- Le document emploie cette situation pour illustrer une spéciation allopatrique possible ; il ne fournit pas ici un test direct complet de l’isolement reproducteur entre toutes les populations.
Hypothèses
- La séparation géographique limite le flux de gènes et, avec des pressions de sélection différentes, contribue à une divergence pouvant conduire à la spéciation.
- Les différences observées peuvent exister sans isolement reproducteur complet ; des échanges génétiques ou d’autres histoires demeurent possibles.
Preuves à fournir
- Un suivi de croisements, de reproduction effective ou de flux de gènes permettrait de tester directement l’isolement reproducteur.
- La distribution géographique et les différences de milieu rendent plausible une divergence de trajectoires, sans suffire seules à définir deux espèces.
- Des caractères ou séquences comparés sur plusieurs populations aideraient à départager une divergence héritée d’une variation liée seulement au milieu.
- La biologie de dispersion de l’espèce détermine si une barrière géographique limite réellement les échanges.
Analyse guidée
La conclusion correcte commence par séparer deux niveaux. La géographie peut réduire les occasions de rencontre et donc le flux de gènes ; elle fournit un mécanisme possible d’isolement. Mais l’isolement reproducteur concerne la transmission effective d’allèles entre populations. L’exemple documentaire montre une distribution séparée, des différences et des milieux contrastés, ce qui est compatible avec une divergence. Il ne permet pas, à lui seul, d’affirmer que la spéciation est achevée. Une réponse rigoureuse propose donc une preuve supplémentaire : vérifier si des individus de ces populations peuvent encore produire une descendance fertile dans des conditions pertinentes ou rechercher un flux de gènes dans des échantillons décrits.
Diagnostic d’erreur
Indice observéDéclarer qu’une barrière géographique crée automatiquement une nouvelle espèce.
CauseLa séparation spatiale est confondue avec l’isolement reproducteur, qui porte sur l’échange génétique effectif et peut avoir des causes non géographiques.
Correction expliquée
Écris d’abord ce que la barrière peut limiter, puis demande la preuve de reproduction ou de flux de gènes qui permet de discuter la spéciation.
Étape du cours · 7 à 13 min
Construire une parenté et expliquer des innovations
Un arbre phylogénétique est une hypothèse de parenté construite à partir de caractères ou de séquences. Il ne classe pas les espèces actuelles de la moins à la plus évoluée : toutes ont une histoire évolutive depuis leurs ancêtres communs. Dans un arbre enraciné, un nœud représente un ancêtre commun hypothétique des lignées qui en partent. Deux taxons frères partagent un ancêtre commun plus récent entre eux qu’avec un taxon placé sur une branche extérieure dans le même modèle.
Pour construire un petit arbre, on commence par une matrice explicite. Voici un modèle hypothétique de quatre taxons : O = 0,0 ; C = 1,0 ; A = 1,1 ; B = 1,1, pour les caractères X puis Y. O sert de groupe externe dans cet exercice. Avec l’hypothèse simplificatrice d’une acquisition de chaque caractère, sans perte ni convergence, X rassemble C, A et B ; Y rassemble A et B. La topologie la plus parcimonieuse dans ce modèle est donc (O,(C,(A,B))).
Cette topologie affirme seulement des parentés conditionnelles aux caractères, au codage et aux hypothèses annoncés. Elle ne donne ni dates, ni durée de branches, ni niveau de perfection. A et B sont taxons frères parce qu’ils partagent l’ancêtre commun le plus récent de l’arbre proposé. Faire tourner un nœud peut modifier l’ordre visuel des étiquettes sans modifier les embranchements : un dessin vertical ou horizontal doit donc être lu à partir des nœuds, non de la place haute ou basse d’un nom.
Un arbre d’espèces n’est pas toujours l’histoire simple de chaque gène. Un transfert horizontal est le passage d’un matériel génétique entre lignées autrement que par la transmission parent-descendance. Les travaux de phylogénomique demandent de départager un transfert de signaux statistiques ou d’autres histoires génétiques possibles. L’endosymbiose est un cas majeur d’innovation cellulaire : l’origine endosymbiotique des mitochondries, issues d’une bactérie intégrée, et des chloroplastes, issus d’une cyanobactérie intégrée, est établie par des indices convergents. ADN propre, parentés phylogénétiques avec ces lignées et doubles membranes s’y accordent ; des gènes ont ensuite été transférés vers le noyau de l’hôte. Cette histoire explique l’origine bactérienne de la respiration mitochondriale et, dans les lignées photosynthétiques, celle de la photosynthèse chloroplastique.
Une innovation peut aussi résulter de la cooptation d’un gène viral. Mi et collègues (2000) étudient la syncytine, une protéine de fusion codée par un gène d’enveloppe du rétrovirus endogène humain HERV-W et exprimée dans des cellules placentaires. Leurs essais montrent une capacité de fusion cellulaire. L’événement d’intégration viral est horizontal, tandis que le gène codant la syncytine peut ensuite être transmis verticalement aux descendants. Le cas illustre une fonction nouvelle dans une lignée, sans faire d’un seul gène l’explication de toute l’histoire du placenta.
La synthèse du chapitre relie ainsi deux échelles. Dans un écocomplexe, une diversité d’organismes, de gènes et d’interactions peut soutenir des processus dont les effets deviennent des services pour des bénéficiaires identifiés. Dans une population, la diversité génétique rend possibles des changements de fréquence par sélection, dérive et flux de gènes. L’arbre aide à formuler une parenté et les exemples de transfert expliquent des innovations, sans promettre une trajectoire d’adaptation. Une réponse solide indique la donnée, le mécanisme, la portée et l’incertitude qui restent à examiner.
Voir pour comprendre
Construire une parenté à partir de deux caractères
Modèle hypothétique : une acquisition par caractère, sans perte ni convergence.
| Taxon hypothétique | Caractère X | Caractère Y | Lecture dans le modèle |
|---|---|---|---|
| O | 0 | 0 | Groupe externe |
| C | 1 | 0 | Partage X avec A et B |
| A | 1 | 1 | Taxon frère de B |
| B | 1 | 1 | Taxon frère de A |
Lis le schéma. Compare les états de X et Y, puis place les acquisitions avant de lire les taxons frères.
X réunit C, A et B ; Y réunit A et B : (O,(C,(A,B))) dans le modèle annoncé.
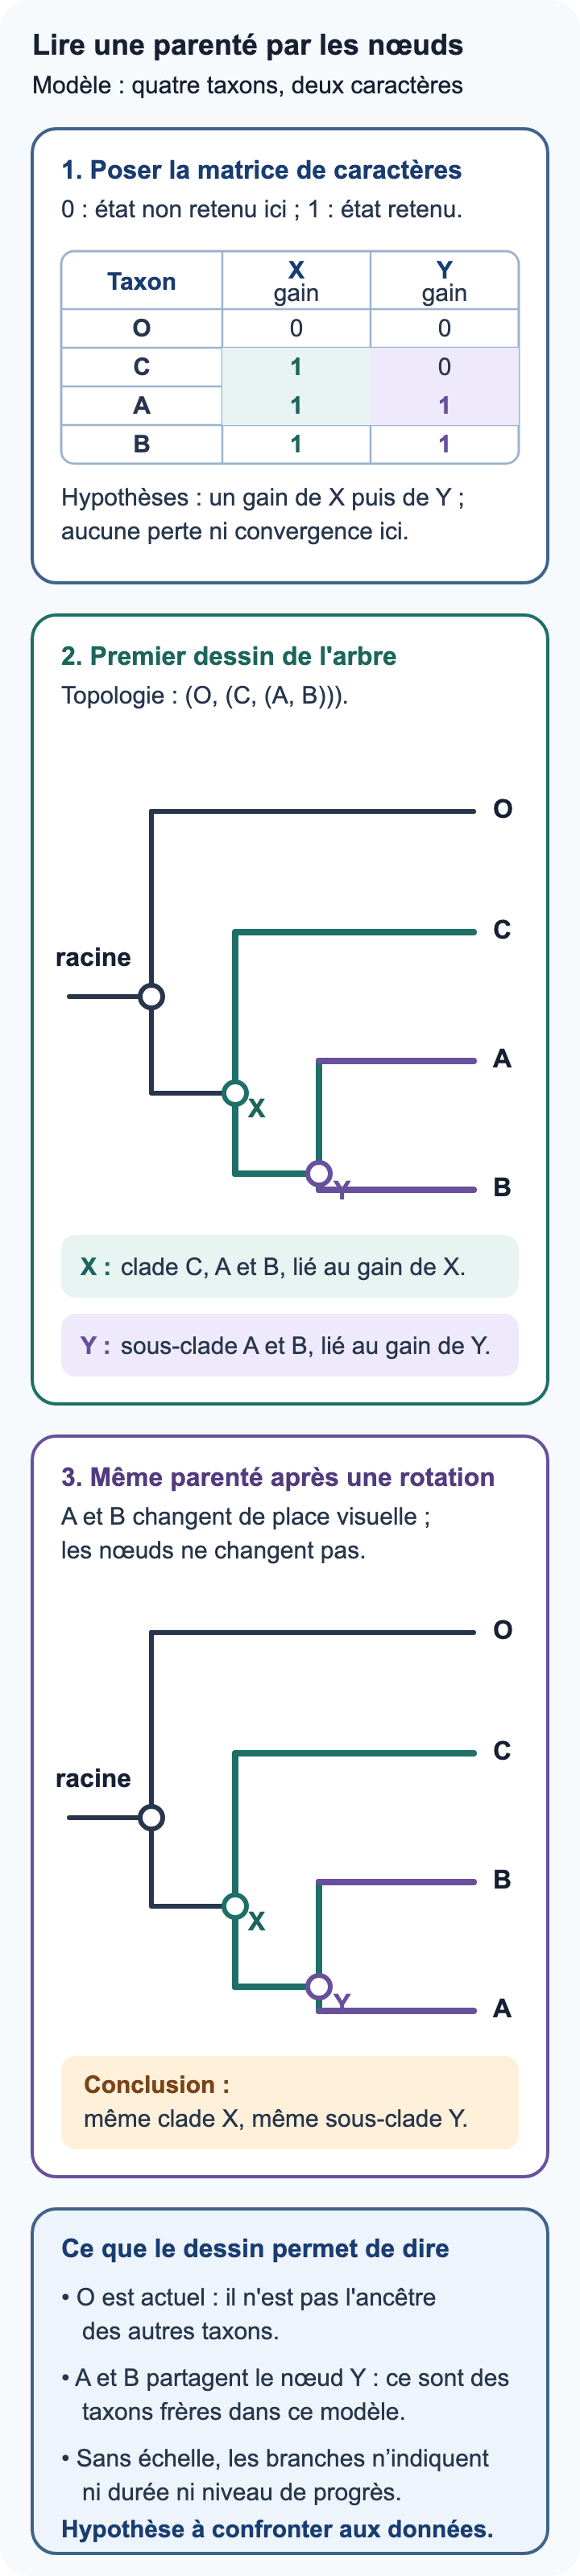
Dans ce modèle, les gains uniques de X puis de Y conduisent à la topologie (O, (C, (A, B))). Une rotation autour d'un nœud change l'ordre des noms sans changer les clades.
Situation hypothétique d'entraînement, construite à partir des principes de lecture des arbres phylogénétiques exposés par OpenStax, Biology 2e, section 20.1, consultée le 11 septembre 2026. Elle ne reproduit aucune figure et ne constitue pas une phylogénie de taxons réels. Elle suppose un gain de chacun des deux caractères, sans perte ni convergence ; d'autres données ou hypothèses pourraient conduire à une autre reconstruction.
Maxdecours, dessin pédagogique original · Illustration originale Maxdecours · vérifié le 11/09/2026
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionQue peut-on construire et lire à partir de la matrice hypothétique O = 00, C = 10, A = 11, B = 11 pour les caractères X et Y ?
Observations
- Le taxon O porte X = 0 et Y = 0 ; il sert de groupe externe dans le modèle.
- C, A et B partagent X = 1, tandis que O porte X = 0.
- A et B partagent Y = 1, tandis que O et C portent Y = 0.
- Le modèle suppose une acquisition unique de chaque caractère, sans perte ni convergence, et ne fournit aucune durée.
Hypothèses
- X est acquis sur la branche commune à C, A et B ; Y est acquis sur la branche commune à A et B, ce qui donne (O,(C,(A,B))).
- Les ressemblances pourraient résulter de plusieurs acquisitions, de pertes ou de convergences ; cette autre hypothèse exigerait d’autres données ou un autre modèle.
Preuves à fournir
- L’état 1 de X rassemble C, A et B dans l’hypothèse d’une acquisition unique.
- L’état 1 de Y rassemble A et B dans la même hypothèse.
- Une rotation au nœud de A et B conserve leurs liens aux mêmes nœuds et ne modifie donc pas la topologie.
- La matrice ne contient ni horloge, ni fossile, ni longueur de branche : elle ne date pas les divergences.
Analyse guidée
On lit d’abord la matrice avant de tracer. X = 1 est commun à C, A et B ; dans le modèle choisi, son acquisition est placée après la divergence de O. Y = 1 est commun à A et B ; son acquisition est placée après la divergence de C. On obtient (O,(C,(A,B))). A et B sont alors frères dans cette hypothèse parce qu’ils partagent le nœud le plus récent. Une rotation de leur nœud donne (O,(C,(B,A))) : l’ordre imprimé change, la parenté ne change pas. Il serait faux de dire que B est « plus évolué » parce que son étiquette est plus à droite, ou de dater une branche alors qu’aucune durée n’est fournie.
Diagnostic d’erreur
Indice observéLire la position haute, basse, droite ou gauche d’une étiquette comme un niveau de progrès ou une date.
CauseLa géométrie du dessin est confondue avec les nœuds de parenté ; une rotation est prise pour une modification de l’histoire évolutive.
Correction expliquée
Repère le nœud commun le plus récent et les caractères qui soutiennent chaque embranchement. Ne conclus sur le temps que si une échelle temporelle est explicitement fournie.
Poursuivre avec l’abonnement
Relier services écologiques et évolution
Étudie les sept cas corrigés, les grilles de lecture et l’arbre commenté.
Analyse les six taux de visite, résous les dossiers de transfert et entraîne-toi avec les questions corrigées et les cartes.
21 questions · 21 cartes. La reprise de ce cours est enregistrée localement dans ton navigateur.
Voir les offres Déjà abonné ? Se connecterVérifier et prolonger
Sources du cours
Édition Maxdecours · Vérifié le .
Spécialité biologie-écologie, Terminale : services écosystémiques, agroécologie et évolution de la biodiversité.
- Programme de l’enseignement de spécialité de biologie-écologie de la classe terminaleChloroFil, Ministère de l’Agriculture et de la Souveraineté alimentaire · consulté le 2026-09-11
- Arrêté du 23 juillet 2019 fixant le programme de biologie-écologieLégifrance · consulté le 2026-09-08
- Cadrage de l'épreuve terminale de biologie-écologie à compter de la session 2024Bulletin officiel du ministère de l'Agriculture · consulté le 2026-09-08
- Arrêté du 19 juin 2026 sur le choix entre biologie-écologie et sciences de la vie et de la TerreLégifrance · consulté le 2026-09-08
- Évaluation des compétences expérimentales en biologie-écologieChloroFil, ministère de l'Agriculture · consulté le 2026-09-08
- Sujet zéro et grilles de l'épreuve écrite de biologie-écologieInspection de l'enseignement agricole, Chlorofil · consulté le 2026-08-21
- A global synthesis reveals biodiversity-mediated benefits for crop productionScience Advances, version intégrale PMC · consulté le 2026-09-11
- 19.2 Population GeneticsOpenStax, Biology 2e · consulté le 2026-09-11
- 18.2 Formation of New SpeciesOpenStax, Biology 2e · consulté le 2026-09-11
- 20.1 Organizing Life on EarthOpenStax, Biology 2e · consulté le 2026-09-11
- 20.3 Perspectives on the Phylogenetic TreeOpenStax, Biology 2e · consulté le 2026-09-11
- Selection of Resistant Bacteria at Very Low Antibiotic ConcentrationsPLOS Pathogens · consulté le 2026-09-11
- Experimental design and statistical rigor in phylogenomics of horizontal and endosymbiotic gene transferBMC Evolutionary Biology via PubMed · consulté le 2026-09-11
- Syncytin is a captive retroviral envelope protein involved in human placental morphogenesisNature via PubMed · consulté le 2026-09-11
© 2026 Maxdecours.com · Comprendre et progresser