
Biologie-écologie · Terminale
Fonctionnement, succession et résilience des écosystèmes
Un écosystème associe un milieu et des communautés en interaction. Les groupes fonctionnels contribuent à la production de matière, à son recyclage et aux transferts d’énergie. Après une perturbation, sa trajectoire dépend de son histoire, des conditions locales et des espèces capables de se maintenir ou de revenir.
Explications et exemples en accès libre. Ateliers, quiz et cartes avec l’abonnement.
Prévoir mon tempsExplications et exemples en accès libre
Une première étude des explications, schémas, exemples résolus et erreurs expliquées. Les activités, productions, quiz et cartes réservés à l’abonnement ne sont pas comptés ici.
- Comprendre3212 mots d’explication et 7 schémas et 1 document
- 22 à 37 min
- Étudier les exemples et les erreurs7 cas, exemples et activités guidés
- 21 à 35 min
Étude du cours en accès libre, environ40 min à 1 h 15
Voir le calcul et le temps par étape
Le calcul suit automatiquement les explications et les tâches présentes dans le cours. Ses coefficients sont des repères de planification, pas des temps mesurés auprès d’élèves.
- Lecture active : 3212 mots, à raison de 160 à 220 mots par minute.
- Schémas : 7, avec 1 à 2 min pour lire chacun.
- Cas scientifique : 7 × 3 à 5 min.
- 5 outils de référence (1 à 2 min chacun).
- Délimiter l’écosystème et ses échelles5 à 10 min
- Relier groupes fonctionnels, matière et interactions7 à 13 min
- Lire une succession et comparer des trajectoires5 à 10 min
- Calculer une perte de masse sans changer le processus mesuré5 à 10 min
- Distinguer résistance, résilience et échelles de diversité5 à 10 min
- Discuter une restauration avec objectifs et indicateurs6 à 10 min
- Transférer une trajectoire vers un autre milieu5 à 10 min
Les sous-totaux sont arrondis à la minute, puis additionnés. La fourchette totale est élargie aux cinq minutes voisines. Les étapes ci-dessus comprennent leurs explications et exemples ; elles ne s’ajoutent pas une seconde fois au total.
Adapte ce repère à tes acquis et au soin apporté aux exercices. Les pauses, les reprises, la consultation des sources externes et les révisions suivantes s’ajoutent selon tes besoins.
Avec les ateliers, les analyses documentaires, le quiz et les cartes : environ 1 h 50 à 3 h 15, à répartir sur plusieurs séances.
Objectifs du cours
Ce que tu vas savoir faire
- Relier biotope, biocénose, biodiversité et échelles d’organisation.
- Distinguer groupes fonctionnels, cycles de matière et flux d’énergie.
- Calculer la connectance d’un réseau après avoir défini les espèces et la convention des liens.
- Expliquer une succession par des filtres, les traits des espèces et l’histoire des perturbations.
- Calculer moyenne et dispersion sans inventer les conditions d’une comparaison.
- Distinguer résistance, résilience, richesse, composition et processus écologique.
- Examiner les objectifs et indicateurs d’une restauration dans son contexte.
Repère visuel Biologie-écologie
De l’interaction à la trajectoire
Décrire un état, expliquer un processus et suivre une récupération répondent à trois questions différentes.
- 1SituerDéfinis le milieu, les espèces, l’échelle et la période.
- 2RelierIdentifie les interactions et les processus auxquels elles contribuent.
- 3MesurerConserve les unités et distingue indicateur, moyenne et comparaison.
- 4SuivreCompare les trajectoires avec une référence et examine ce qui reste à mesurer.
Une liste d’espèces décrit une composante du système. Un processus et une trajectoire demandent leurs propres observations.
Étape du cours · 5 à 10 min
Délimiter l’écosystème et ses échelles
Un écosystème associe un biotope et une biocénose en interaction. Le biotope désigne les composantes physiques et chimiques du milieu, par exemple l’humidité du sol, la lumière ou la température. La biocénose regroupe les êtres vivants présents dans ce milieu. Nommer seulement une espèce ou seulement le sol ne décrit donc pas l’écosystème : il faut préciser les deux ensembles et les interactions que le dossier permet d’examiner.
La biodiversité spécifique concerne le nombre et l’identité des espèces dans le périmètre étudié. La biodiversité génétique concerne la diversité des variantes héréditaires au sein d’une même espèce. Deux prairies peuvent compter le même nombre d’espèces tout en différant par la diversité génétique d’une plante dominante. Inversement, la présence de plusieurs espèces ne renseigne pas directement sur les variantes génétiques qu’elles portent.
Les échelles changent la question posée. Une mare, sa lisière et une haie voisine peuvent être étudiées comme des systèmes locaux. L’ensemble de ces milieux reliés forme un écocomplexe : les organismes, l’eau ou la matière peuvent circuler entre ses composantes. Un microécosystème est un système de très petite taille choisi pour l’étude ; un biome regroupe de vastes milieux dominés par des conditions climatiques et une végétation caractéristiques ; la biosphère désigne l’ensemble des écosystèmes de la Terre. Une observation à l’échelle d’une mare ne décrit pas automatiquement ces autres niveaux.
Un écotone est une zone de transition entre deux milieux, par exemple entre une prairie humide et une haie. Ses conditions peuvent combiner des caractéristiques des deux milieux ou en présenter de nouvelles. Il ne suffit pas d’écrire qu’un écotone est « riche » : le dossier doit préciser les espèces, la surface, la période et l’indicateur comparé. Une frontière dessinée sur une carte ne rend pas les deux côtés indépendants par elle-même.
Décrire la structure d’un écosystème ne démontre pas encore son fonctionnement. Une liste d’espèces peut aider à formuler une hypothèse sur des interactions, mais elle ne mesure ni pollinisation, ni décomposition, ni transfert de matière. Pour passer de la description à une explication, on distingue ce qui est observé, la relation proposée et la donnée qui permettrait de la discuter.
Dans un dossier, commence par délimiter le biotope, la biocénose, l’échelle et l’indicateur. Cette étape évite deux erreurs fréquentes : prendre le nombre d’espèces pour toute la biodiversité, et généraliser une observation locale à tous les milieux voisins. La comparaison reste utile si les unités et les dates sont explicites ; elle devient plus fragile lorsque l’on change de surface, de saison ou de niveau d’organisation sans le signaler.
Voir pour comprendre
Les échelles pour décrire un écosystème
Chaque notion porte sur un objet et une échelle qu’il faut distinguer avant d’interpréter.
| Notion | Objet décrit | Échelle utile | Ce qui manque pour conclure davantage |
|---|---|---|---|
| Biotope | Conditions physiques et chimiques | Milieu délimité | Les organismes et leurs interactions |
| Biocénose | Ensemble des êtres vivants | Milieu et période annoncés | Les variantes génétiques au sein d’une espèce |
| Biodiversité spécifique | Espèces présentes | Périmètre du relevé | La diversité génétique ou le fonctionnement |
| Écocomplexe et écotone | Milieux reliés et transition | Plusieurs milieux voisins | Une mesure de flux ou de déplacement |
Lis le schéma. Lis l’objet étudié, puis vérifie ce que le document observe réellement avant de généraliser.
Une liste d’espèces décrit une biodiversité spécifique locale ; elle ne suffit ni à mesurer la diversité génétique ni à prouver un flux dans un écocomplexe.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionQue permet de décrire un dossier didactique sur une mare, sa lisière et une haie voisine ?
Observations
- La carte textuelle synthétique du 12 juin 2026 délimite trois zones continues : une mare de 30 m², une lisière humide de 10 m² et une haie de 20 m².
- Dans les 10 m² de lisière, le document nomme le jonc épars, la grenouille rousse et le carabe doré ; il ne fournit aucune donnée de variantes génétiques pour ces espèces.
- La lisière de 10 m² est placée entre la mare et la haie dans cette carte ; elle est donc définie comme un écotone dans le dossier synthétique.
- La carte indique la continuité des trois zones, mais ne rapporte ni déplacement d’organismes ni flux de matière entre elles.
Hypothèses
- La lisière peut être étudiée comme une zone de transition dont la composition diffère de celle de la mare et de la haie.
- Le dossier permet de décrire une biodiversité spécifique locale, mais pas une biodiversité génétique.
- Les trois zones peuvent être considérées ensemble dans une question sur l’écocomplexe, à condition de ne pas attribuer un déplacement non observé.
Preuves à fournir
- La surface et la date sont explicites, et les conditions du biotope sont distinguées des espèces de la biocénose dans les documents.
- Les noms de plusieurs espèces renseignent la biodiversité spécifique ; aucune comparaison de variantes au sein d’une espèce n’est fournie.
- La position entre deux milieux justifie le terme d’écotone, sans établir seule une fonction ou une richesse particulière.
- La continuité de la carte délimite un écocomplexe possible ; elle ne mesure pas à elle seule les flux entre zones.
Analyse guidée
Le 12 juin 2026, la carte délimite une mare de 30 m², une lisière humide de 10 m² et une haie de 20 m². Chaque zone possède un biotope et une biocénose. Les trois espèces nommées dans la lisière permettent de décrire une biodiversité spécifique dans ces 10 m². Le document ne donne aucune information génétique au sein du jonc épars, de la grenouille rousse ou du carabe doré : cette seconde dimension de la biodiversité reste inconnue. La lisière est un écotone parce qu’elle se situe entre les deux milieux définis. Enfin, les trois zones peuvent être reliées dans une question sur l’écocomplexe, mais la carte seule ne prouve ni déplacement ni flux.
Diagnostic d’erreur
Indice observéConclure que la lisière possède une forte biodiversité génétique parce que trois espèces y sont nommées.
CauseLa diversité entre espèces est confondue avec la diversité de variantes héréditaires à l’intérieur d’une espèce.
Correction expliquée
Écris d’abord l’échelle visée. Les noms d’espèces documentent ici la biodiversité spécifique ; une étude génétique distincte serait nécessaire pour conclure sur la diversité génétique.
Étape du cours · 7 à 13 min
Relier groupes fonctionnels, matière et interactions
Un groupe fonctionnel rassemble des organismes qui jouent un rôle écologique comparable dans le processus étudié, sans exiger qu’ils appartiennent à la même espèce ou au même groupe taxonomique. Cette notion aide à relier des organismes à une fonction, mais elle ne remplace pas la richesse spécifique : la connectance d’un réseau compte des espèces identifiées, pas des groupes fonctionnels. Une espèce peut aussi participer à plusieurs interactions selon le contexte.
La matière circule et se transforme entre organismes, sol, eau et atmosphère. Des éléments chimiques peuvent être réutilisés après transformation : c’est le principe d’un cycle de matière. L’énergie, elle, entre notamment sous forme d’énergie lumineuse captée par des producteurs et se dissipe au cours des transferts ; elle ne revient pas au point de départ sous la même forme. Une flèche trophique sert à représenter un transfert choisi, pas tous les processus de l’écosystème.
Un producteur primaire fabrique de la matière organique à partir de matière minérale grâce à une source d’énergie. Le rôle de pollinisateur consiste, lui, à transporter du pollen et à contribuer à la pollinisation. Une abeille peut remplir ce rôle sans fabriquer la matière organique de la plante à partir de dioxyde de carbone. Plante et pollinisateur sont donc complémentaires, mais leurs fonctions ne sont pas interchangeables.
Un détritivore consomme ou fragmente de la matière organique morte. La minéralisation est une transformation qui rend des éléments minéraux à nouveau disponibles, notamment sous l’action de microorganismes. Dire qu’un détritivore « fait la minéralisation » efface cette différence de processus. Un dossier peut étudier comment plusieurs organismes participent au devenir de la litière, sans attribuer à un seul organisme toute la transformation.
Certaines espèces modifient les conditions du milieu et influencent d’autres organismes : on les appelle espèces ingénieures. Un castor qui modifie localement l’écoulement de l’eau ou un ver de terre qui transforme le sol illustrent ce rôle à des échelles différentes. D’autres groupes fonctionnels, comme des bactéries fixatrices de diazote, transforment du N₂ atmosphérique en formes azotées utilisables dans certaines associations. Il ne faut pas attribuer directement cette fixation à la plante : le mécanisme dépend des microorganismes et du contexte décrit. Ce statut dépend du mécanisme étudié ; il ne signifie pas qu’une espèce remplace les autres groupes fonctionnels.
Un réseau d’interactions doit annoncer sa convention avant tout calcul. Le réseau hypothétique d’entraînement suivant utilise quatre espèces réelles : la grande ortie E1, Urtica dioica, le paon-du-jour E2 au stade chenille, Aglais io, le puceron de l’ortie E3, Microlophium carnosum, et la mésange charbonnière E4, Parus major. Il suppose seulement les quatre interactions directes E1-E2, E1-E3, E2-E4 et E3-E4 ; il ne constitue ni un inventaire ni une observation de terrain. Si une interaction directe compte deux liens, ces quatre interactions donnent L = 8 ; avec S = 4 espèces, CT = L / [S(S−1)] = 8 / [4(4−1)] = 2/3. Les flèches de transfert éventuellement dessinées ne constituent pas un second décompte, et le réseau n’est pas exhaustif. Une connectance plus élevée peut favoriser la résilience si les relations supplémentaires offrent des voies alternatives au maintien ou au rétablissement des fonctions. L’effet dépend toutefois de la nature et de l’intensité des interactions ainsi que de la perturbation.
Voir pour comprendre
Fonctions, transferts et réseau d’espèces
La grille distingue les rôles écologiques, les processus et la convention utilisée pour calculer une connectance dans un réseau hypothétique.
| Objet | Ce qu’il désigne | Exemple dans le raisonnement | Confusion à éviter |
|---|---|---|---|
| Groupe fonctionnel | Rôle écologique comparable | Pollinisateur ou détritivore | Le compter comme une espèce du réseau |
| Cycle de matière | Transformations et réutilisation d’éléments | Litière puis éléments minéraux disponibles | Le confondre avec le flux d’énergie |
| Interaction directe | Relation entre deux espèces nommées | E2-E4 dans le réseau hypothétique | La compter comme une seule flèche sans convention |
| Connectance | Rapport L/[S(S−1)] | 8/12 = 2/3 avec S = 4 | La transformer en preuve de résilience |
Lis le schéma. Identifie d’abord l’objet compté : espèce, rôle fonctionnel, interaction directe ou flèche de transfert.
Dans le réseau hypothétique, quatre interactions directes valent L = 8 avec la convention annoncée ; CT = 2/3 décrit ce réseau, pas une résilience garantie.
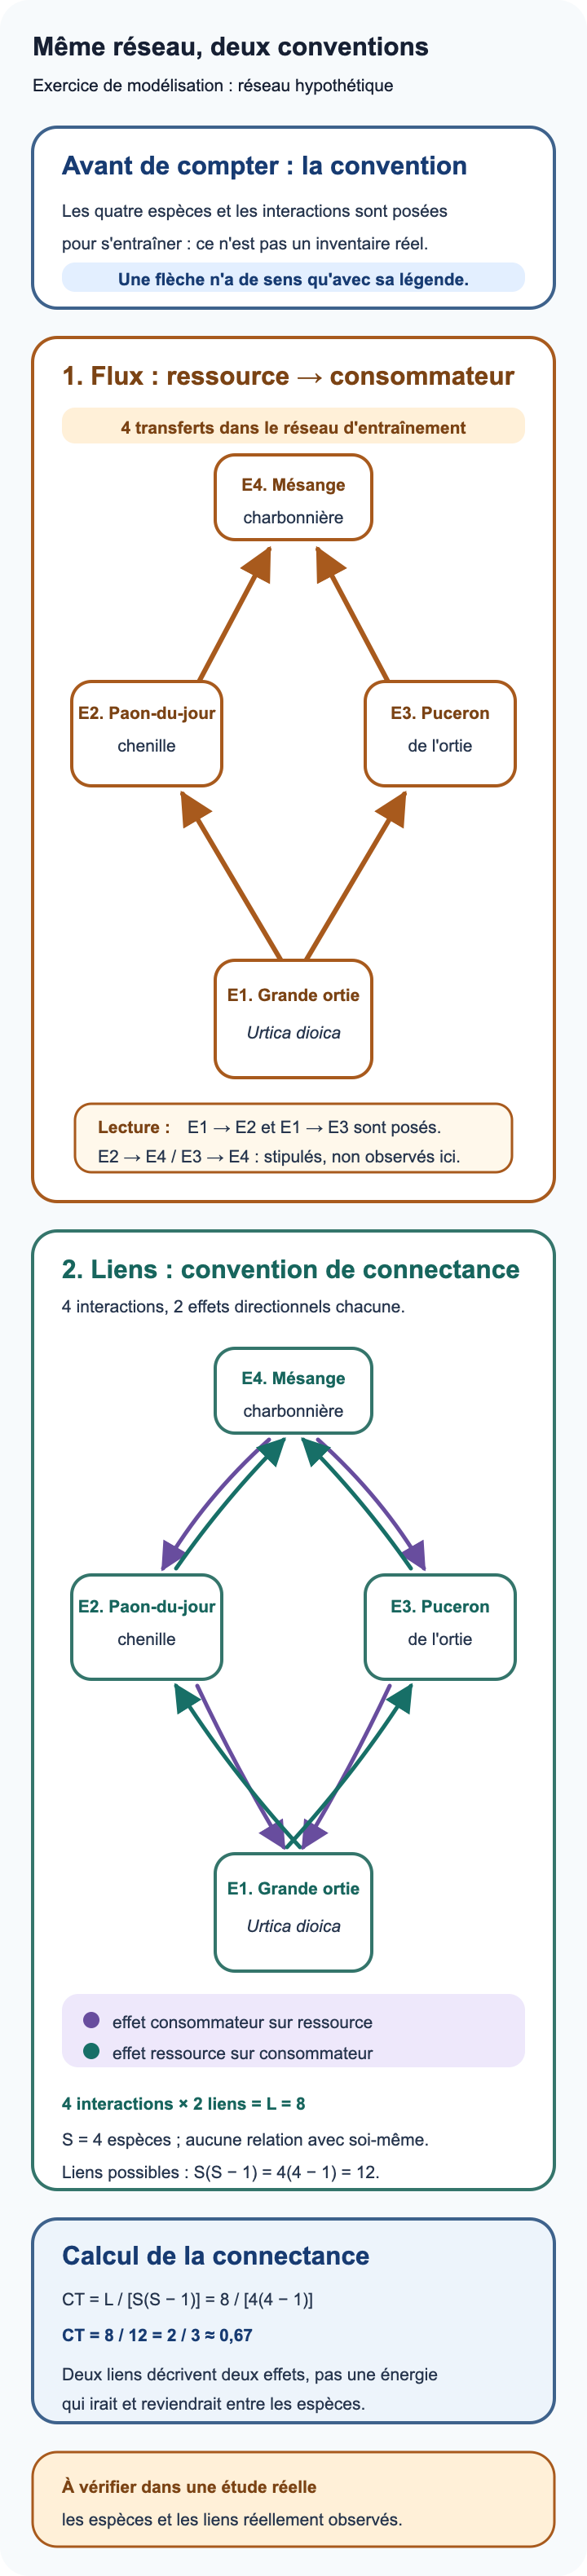
Le réseau sert à s'entraîner à deux conventions. Un flux va de la ressource ou de la proie vers le consommateur ; deux liens de connectance décrivent deux effets directionnels associés à une interaction, sans faire circuler l'énergie dans les deux sens.
Ce réseau est une situation hypothétique d'entraînement, avec quatre interactions posées. Les liens de la chenille et du puceron vers la mésange sont stipulés pour l'exercice, non présentés comme des observations de terrain. Le document ne prétend ni inventorier les espèces d'un milieu réel ni établir une liste exhaustive des interactions. Les espèces et les stades sont écrits dans chaque nœud pour que le décompte reste traçable.
Maxdecours, dessin pédagogique original · Illustration originale Maxdecours · vérifié le 09/09/2026
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionComment lire un réseau hypothétique d’entraînement de quatre espèces sans confondre rôle fonctionnel, flèche de transfert et connectance ?
Observations
- Le réseau hypothétique d’entraînement nomme quatre espèces : grande ortie E1, Urtica dioica ; paon-du-jour E2 au stade chenille, Aglais io ; puceron de l’ortie E3, Microlophium carnosum ; mésange charbonnière E4, Parus major.
- Il suppose exactement quatre interactions directes : E1-E2, E1-E3, E2-E4 et E3-E4. Aucune autre interaction n’est donnée dans ce dossier, qui n’est pas un inventaire de terrain.
- La convention de calcul annonce qu’une interaction directe correspond à deux liens pour L.
- Le réseau contient S = 4 espèces, tandis que les termes producteur, pollinisateur et détritivore désignent des rôles ou processus qui ne sont pas des espèces supplémentaires.
Hypothèses
- La connectance du réseau hypothétique est calculable avec la convention annoncée, sans compléter le réseau par des interactions supplémentaires.
- Une flèche de transfert trophique peut aider à lire une relation, mais elle ne remplace pas la convention de double décompte des interactions directes.
- La valeur calculée caractérise seulement ce petit réseau didactique et ne mesure pas à elle seule la résilience de tout un écosystème.
Preuves à fournir
- Quatre interactions directes, comptées deux fois, donnent L = 8.
- S(S−1) vaut 4 × 3 = 12 possibilités ordonnées dans cette convention.
- CT = 8/12 = 2/3 pour le réseau défini.
- Aucun document ne fournit les interactions absentes, leur intensité, ni une mesure de récupération après perturbation.
Analyse guidée
Le réseau hypothétique compte quatre espèces identifiées, donc S = 4. Il ne faut ni ajouter des guildes ni inférer des relations non écrites ou des relations de terrain. Les quatre interactions supposées sont comptées deux liens chacune : L = 4 × 2 = 8. Le dénominateur est S(S−1) = 4 × 3 = 12, d’où CT = 8/12 = 2/3. Une flèche de transfert représentée entre deux espèces sert à lire une direction choisie ; elle ne crée pas des liens supplémentaires dans ce calcul. La connectance décrit la densité de relations du réseau hypothétique avec cette convention, pas une garantie de stabilité ni une mesure de résilience.
Diagnostic d’erreur
Indice observéCompter les quatre flèches fournies comme L = 4, puis conclure qu’un réseau de CT = 2/3 est forcément résilient.
CauseLa convention de deux liens par interaction directe est oubliée, et un indicateur structural est transformé en preuve générale de récupération.
Correction expliquée
Annonce la convention, calcule L = 8 puis CT = 8/12 = 2/3. Conclus seulement sur la structure du réseau hypothétique et demande une observation de trajectoire pour discuter la résilience.
Étape du cours · 5 à 10 min
Lire une succession et comparer des trajectoires
Une succession écologique décrit des changements de composition et de fonctionnement après une perturbation ou lors de la formation d’un milieu. Dans une présentation simplifiée, on peut distinguer un stade pionnier, un stade juvénile et un état d’équilibre dynamique. Ces termes décrivent des configurations et des trajectoires possibles ; ils ne désignent pas une destination immuable du milieu. L’histoire des perturbations et les conditions locales peuvent modifier la trajectoire observée.
Les espèces pionnières sont souvent capables de coloniser rapidement un espace disponible. Des traits associés à une production importante de propagules ou à une installation rapide peuvent favoriser cette étape dans certains contextes. Les repères r et K permettent de comparer des extrêmes théoriques de traits d’histoire de vie ; ils ne classent pas définitivement les espèces en deux catégories. Une même espèce peut répondre différemment selon les ressources, les perturbations et les interactions.
Un filtre de dispersion limite l’arrivée des organismes vers un site. Un filtre abiotique sélectionne les organismes compatibles avec des conditions comme l’humidité, la lumière ou la salinité. Un filtre biotique dépend des interactions avec les êtres vivants déjà présents, par exemple compétition, herbivorie ou facilitation. Ces filtres peuvent agir ensemble : repérer une espèce absente ne suffit pas à désigner lequel explique cette absence.
Un équilibre dynamique signifie que des composantes varient autour d’un état ou se renouvellent sans que le système soit figé. Il ne faut pas en déduire qu’aucune perturbation n’agit, ni que toutes les espèces restent constantes. Les indicateurs choisis déterminent ce que l’on peut comparer : un retour du nombre d’espèces ne prouve pas à lui seul le retour de la même composition, des mêmes interactions ou d’un même processus.
Une chronoséquence compare des sites différents supposés représenter des étapes d’âges différents. Elle est utile lorsque les mêmes conditions de départ et les périodes sont documentées, mais elle ne suit pas un seul site dans le temps. Un suivi temporel mesure au contraire les changements d’une même unité à plusieurs dates. Confondre les deux peut attribuer au temps des différences qui étaient déjà présentes entre les sites.
Pour comparer une succession, annonce donc le type de document, les sites ou dates, le stade défini et l’indicateur. Une chronoséquence peut suggérer une trajectoire à examiner ; elle ne remplace pas automatiquement un suivi longitudinal. Cette distinction aide à garder des hypothèses concurrentes : différences de dispersion, de sol ou d’interactions peuvent contribuer à l’écart entre deux sites et demandent des informations propres à chaque facteur.
Voir pour comprendre
Comparer des stades sans inventer une trajectoire
La grille relie les stades de succession, les filtres et le type de comparaison disponible.
| Élément | Ce qu’il indique | Exemple de question | Limite à conserver |
|---|---|---|---|
| Stade pionnier | Installation précoce dans un contexte défini | Quels traits favorisent l’installation ? | Il ne fixe pas le destin du site |
| Filtre abiotique | Compatibilité avec des conditions physiques | La lumière ou l’humidité diffèrent-elles ? | Il n’exclut pas les autres filtres |
| Chronoséquence | Comparaison de sites distincts | Les stades sont-ils comparables ? | Elle ne suit pas le même site |
| Suivi temporel | Mesures répétées d’une même unité | Comment ce site change-t-il ? | Les méthodes doivent rester comparables |
Lis le schéma. Vérifie d’abord si le document suit la même unité ou compare des sites différents, puis distingue les filtres proposés.
Une chronoséquence suggère une trajectoire entre sites ; un suivi répété documente directement une même unité, tandis que des archives peuvent compléter l’histoire d’autres sites.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionQue permet de conclure un dossier synthétique qui compare trois parcelles dont les dates d’abandon diffèrent, sans suivre le même site au cours du temps ?
Observations
- Le dossier synthétique du 15 juin 2026 compare trois parcelles distinctes de 100 m² : P, abandonnée en 2024, J, abandonnée en 2018, et A, abandonnée en 2008.
- P porte surtout capselle bourse-à-pasteur et pâturin annuel, avec une végétation haute de 12 cm et 90 % de lumière relative ; J porte plantain lancéolé, dactyle aggloméré et trèfle blanc, avec 45 cm et 55 % de lumière relative. La lumière est mesurée au niveau du sol, au même moment, relativement à une référence simultanée en espace ouvert.
- A porte ronce commune et cornouiller sanguin, avec 120 cm de végétation et 20 % de lumière relative. Le dossier décrit ce stade comme arbustif adulte possible, sans donnée de suivi permettant d’affirmer un équilibre dynamique.
- Les états initiaux des trois parcelles, leurs sols détaillés, l’arrivée des propagules, les interactions et la gestion antérieure restent inconnus ; aucune parcelle n’est revisitée à une seconde date.
Hypothèses
- Les trois parcelles peuvent former une chronoséquence didactique proposée pour comparer des stades, sans démontrer l’histoire d’une même parcelle.
- La lumière relative mesurée est compatible avec un rôle de filtre abiotique, sans exclure les filtres de dispersion ou biotiques et sans isoler une cause.
- Les espèces observées en P sont compatibles avec une installation précoce, sans constituer une catégorie r fixe ni annoncer un état final obligatoire.
Preuves à fournir
- P, J et A sont distinctes, leurs dates d’abandon sont différentes et elles sont observées une seule fois le 15 juin 2026 : elles ne constituent pas un suivi longitudinal.
- Les compositions, hauteurs et lumières relatives fournies permettent une comparaison descriptive entre les trois parcelles.
- La lumière relative varie de 90 % dans P à 55 % dans J et 20 % dans A ; elle renseigne un facteur abiotique dans ce dossier synthétique.
- Les états initiaux, sols détaillés, propagules, interactions et gestion antérieure inconnus limitent l’attribution à un filtre unique.
Analyse guidée
Le 15 juin 2026, P, J et A sont trois parcelles distinctes de 100 m² chacune, abandonnées respectivement en 2024, 2018 et 2008. P présente capselle et pâturin annuel à 12 cm sous 90 % de lumière relative ; J présente plantain, dactyle et trèfle à 45 cm sous 55 % ; A présente ronce et cornouiller à 120 cm sous 20 %. Ces informations rendent possible une comparaison descriptive compatible avec une chronoséquence didactique. Elles ne retracent pas l’histoire d’un même site. La lumière fournit une hypothèse de filtre abiotique, mais les états initiaux, sols, dispersion, interactions et gestion restent inconnus. A est un stade arbustif adulte possible, non un équilibre dynamique démontré : il faudrait un suivi d’indicateurs dans le temps pour le discuter.
Diagnostic d’erreur
Indice observéÉcrire que P deviendra nécessairement A, puis appeler A un équilibre dynamique parce que les parcelles sont ordonnées par date d’abandon.
CauseUne chronoséquence de sites différents est prise pour le suivi temporel d’un même site, et un stade arbustif observé une fois est transformé en équilibre dynamique.
Correction expliquée
Indique que P, J et A sont distinctes et observées une fois. Décris une chronoséquence proposée, puis demande un suivi des mêmes unités et des mesures de dispersion ou d’interactions pour tester une trajectoire et un éventuel équilibre dynamique.
Étape du cours · 5 à 10 min
Calculer une perte de masse sans changer le processus mesuré
La litière rassemble des débris organiques, notamment des feuilles mortes. Sa masse peut diminuer parce que des fragments sont emportés, que des substances sont entraînées par l’eau ou que des organismes les consomment et les transforment. La minéralisation est plus précise : de la matière organique est transformée en formes minérales, telles que du dioxyde de carbone ou des ions. Une masse perdue ne mesure donc pas directement la quantité minéralisée.
Pour décrire cette perte sur une période, on divise la différence de masses par la durée. Exemple synthétique : une masse sèche initiale de référence de 400 mg et une masse sèche finale de 340 mg, déterminées dans un protocole comparable sur dix jours, donnent (400 − 340) / 10 = 6 mg/jour. La masse sèche limite la confusion entre variation d’eau et variation de matière. Ce calcul n’exige pas de réaliser un prélèvement.
Un autre jeu synthétique fournit quatre vitesses, 6, 8, 7 et 9 mg/jour. C’est une seule série. La somme vaut 30 et la moyenne 30 / 4 = 7,5 mg/jour. Cette moyenne conserve l’unité des observations. Elle ne signifie pas que chaque mesure vaut 7,5 ni que toute litière perdrait cette masse chaque jour.
La dispersion complète la moyenne. Les écarts à 7,5 sont −1,5, +0,5, −0,5 et +1,5 mg/jour ; la somme de leurs carrés vaut 5 (mg/jour)². L’écart-type d’échantillon est √[5 / (4 − 1)], soit environ 1,291 mg/jour. Le diviseur est ici n − 1. On garde les valeurs non arrondies pendant le calcul, puis on présente le résultat avec sa précision.
Un tableau brut et des points individuels montrent les observations que la moyenne résume. Si l’axe horizontal porte des identifiants d’échantillons, relier les points ne crée pas une chronologie. Pour comparer deux conditions, il faut connaître leur affectation, le substrat, la durée, l’humidité et la méthode avant d’examiner les résultats. Classer les fortes valeurs dans une condition supposée favorable fabriquerait la comparaison.
Une différence de perte de litière peut alors conduire à tester plusieurs explications : rôle des détritivores, activité microbienne, conditions physiques ou effets du dispositif. Des mesures complémentaires et une référence pertinente aident à les départager. La conclusion de notre exemple reste descriptive : moyenne 7,5 et écart-type d’échantillon 1,291 mg/jour pour les quatre valeurs, sans mécanisme unique démontré.
Voir pour comprendre
Calculer et borner une perte de masse
Exemples synthétiques : indicateur, calcul, résultat et portée.
| Donnée | Calcul | Résultat | Portée |
|---|---|---|---|
| 6 ; 8 ; 7 ; 9 mg/jour | 30/4 | 7,5 mg/jour | Moyenne |
| Somme des carrés des écarts : 5 | √(5/3) | 1,291 mg/jour | Dispersion |
| 400 et 340 mg | 60/10 jours | 6 mg/jour | Perte sur dix jours |
| Minéralisation | aucune mesure | non calculable | Processus distinct |
Lis le schéma. Lire unité et durée avant d'interpréter.
7,5 mg/jour décrit une moyenne, pas une minéralisation.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionQue permettent les quatre vitesses synthétiques de perte de masse ?
Observations
- Jeu synthétique de quatre vitesses : 6, 8, 7 et 9 mg/jour, sans modalités comparées.
- Les identifiants désignent des échantillons ; aucune chronologie ne leur est attribuée.
- Exemple de calcul distinct : masse sèche initiale de référence 400 mg, finale 340 mg, période de dix jours dans un protocole comparable.
- Aucune quantité de matière minérale produite n’est fournie.
Hypothèses
- La dispersion peut refléter plusieurs conditions.
- La perte peut combiner plusieurs processus.
Preuves à fournir
- Moyenne : 7,5 mg/jour.
- Écart-type : √(5/3) ≈ 1,291 mg/jour.
- (400−340)/10 = 6 mg/jour.
- Aucun facteur n'est comparé.
Analyse guidée
La moyenne des quatre vitesses vaut (6 + 8 + 7 + 9) / 4 = 7,5 mg/jour. La somme des carrés des écarts à la moyenne vaut 5 ; √(5/3) donne un écart-type d’échantillon d’environ 1,291 mg/jour. L’autre exemple donne (400 − 340) / 10 = 6 mg/jour. Ces deux calculs portent sur une perte de masse, pas sur la minéralisation. Sans modalités documentées, ils ne testent pas non plus un effet de la diversité.
Diagnostic d’erreur
Indice observéAppeler la moyenne un taux de minéralisation.
CauseUn indicateur de masse perdue est confondu avec un processus précis.
Correction expliquée
Garde unité, durée et mécanismes possibles ; demande un indicateur spécifique pour la minéralisation.
Étape du cours · 5 à 10 min
Distinguer résistance, résilience et échelles de diversité
La résistance désigne la capacité à limiter le changement lié à une perturbation ; la résilience concerne le retour après celle-ci. Ces deux propriétés ne sont pas identiques : un milieu peut peu changer au départ mais revenir lentement, ou subir une forte modification puis retrouver une propriété. On doit préciser l’indicateur, la référence, l’échelle et la durée avant de comparer ces réponses.
En 2016, Woods, Biro, Yang et Smith publient une étude d’invertébrés dans douze mares artificielles sans poissons. Six subissent une perturbation chimique, six servent de témoins, et les mêmes mares sont suivies avant puis après. Le cours analyse uniquement les résultats publiés. Le protocole comporte une histoire commune et des habitats aquatiques voisins susceptibles d’abriter des colonisateurs.
La richesse locale compte les espèces par mare ; la richesse régionale les compte sur l’ensemble des six mares d’un groupe, sans additionner plusieurs fois la même espèce. Au premier relevé après perturbation, la richesse locale moyenne est inférieure de 48 % à celle des témoins. À l’échelle régionale, les six mares perturbées totalisent 31 espèces, contre 50 dans les six mares témoins, soit 38 % de moins : (31 − 50) / 50 = −0,38.
Au second relevé, qualifié de six semaines par l’article, la richesse locale moyenne atteint 14,5 espèces par mare dans le groupe perturbé, contre 18,8 chez les témoins. L’écart de 4,3 espèces par mare persiste donc. Ces moyennes non entières sont normales : chaque mare possède un décompte entier, mais la moyenne de plusieurs mares peut être décimale. Les témoins permettent de comparer les groupes à une même période.
À un an, les analyses ne distinguent plus statistiquement les groupes pour la richesse locale et la composition des invertébrés. Une absence de différence détectée n’est pas une preuve d’identité exacte. Les auteurs rapportent aussi une récupération de la richesse régionale, qui atteint 54 espèces dans les six mares perturbées. L’ensemble soutient une résilience des indicateurs suivis dans ce contexte, sans signifier que les mêmes individus sont revenus.
La disponibilité de colonisateurs, leur dispersion, leur reproduction et leurs stades de repos peuvent contribuer à ce retour ; l’étude ne départage pas ces contributions. Un habitat très isolé ou une perturbation touchant aussi les sources de colonisation pourrait suivre une autre trajectoire. Enfin, richesse et composition ne mesurent ici ni la décomposition ni la production : une conclusion sur ces processus demanderait leurs propres observations.
Voir pour comprendre
Résistance et résilience dans douze mares
Résultats attribués à Woods et collègues, 2016.
| Moment | Richesse par mare | Richesse sur six mares | Portée |
|---|---|---|---|
| Premier relevé | 48 % plus faible dans le groupe perturbé | 31 espèces contre 50 | Déficits local et régional distincts |
| Second relevé | 14,5 contre 18,8 espèces par mare | Non détaillée dans ce tableau | Écart local encore présent |
| Un an | Différence non détectée ; composition également comparée | 54 espèces dans le groupe perturbé | Récupération rapportée des descripteurs |
| Processus | Décomposition non mesurée | Production non mesurée | Pas de conclusion sur leur retour |
Lis le schéma. Lire l'échelle et le délai de chaque résultat.
Les richesses locale et régionale ne sont pas le même décompte. Le retour de ces descripteurs ne démontre pas le retour de tous les processus.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionComment les témoins et les deux échelles de richesse aident-ils à interpréter une récupération ?
Observations
- Douze mares artificielles sans poissons, six perturbées et six témoins, suivies avant puis après ; invertébrés recensés.
- Premier relevé après perturbation : richesse locale moyenne inférieure de 48 % à celle des témoins ; richesse régionale 31 espèces contre 50 sur six mares par groupe.
- Second relevé, dit de six semaines : richesse locale moyenne 14,5 contre 18,8 espèces par mare.
- À un an : richesse locale et composition non statistiquement distinguables entre groupes ; 54 espèces dans l’ensemble des six mares perturbées et récupération régionale rapportée par les auteurs.
Hypothèses
- La perturbation filtre des espèces.
- Le réseau peut contribuer au retour.
- Un réseau isolé pourrait évoluer autrement.
Preuves à fournir
- Le premier relevé montre une forte différence de richesse entre groupes, compatible avec une faible résistance de cet indicateur.
- Le déficit régional relatif est (31 − 50) / 50 = −38 %, distinct du déficit local de 48 %.
- Au second relevé, le déficit local moyen est encore de 18,8 − 14,5 = 4,3 espèces par mare.
- Le suivi mesure richesse et composition des invertébrés, mais aucun processus de décomposition ou de production.
Analyse guidée
La forte baisse de richesse montre que cet indicateur a peu résisté à la perturbation. Le déficit relatif dépend de l’échelle : 48 % en moyenne par mare, 38 % sur l’ensemble des six mares. Au second relevé, la différence locale persiste. À un an, les résultats sur richesse locale et composition, ainsi que la récupération régionale rapportée, soutiennent un retour de ces descripteurs. Cela ne démontre ni une identité exacte, ni le rôle exclusif d’un mécanisme de recolonisation, ni la récupération des processus non mesurés.
Diagnostic d’erreur
Indice observéConclure que tout le fonctionnement est rétabli parce que les espèces sont revenues.
CauseUn résultat sur la diversité et la composition est étendu à des processus qui ne sont pas mesurés.
Correction expliquée
Nomme d’abord le descripteur et le délai. Pour discuter la production ou la décomposition, demande une mesure propre à ce processus et une comparaison adaptée.
Étape du cours · 6 à 10 min
Discuter une restauration avec objectifs et indicateurs
La connectivité concerne les possibilités de circulation entre habitats. Un corridor, comme une haie reliant des boisements, peut y contribuer, mais son rôle dépend de l’espèce : il peut être passage, habitat ou filtre. En permettant des déplacements depuis des habitats préservés, des corridors peuvent faciliter la recolonisation après perturbation et contribuer ainsi à la résilience. La connectance étudiée plus haut est un autre concept : elle décrit la densité des liens d’un réseau d’espèces. Une carte de paysage et un calcul de connectance ne mesurent donc pas la même chose.
Les espèces n’influencent pas toutes le milieu de la même manière. Une espèce ingénieure modifie les conditions physiques : les galeries de certains lombrics changent notamment la structure du sol. Une espèce clé de voûte exerce sur la communauté un effet disproportionné relativement à son abondance ou à sa biomasse. Une espèce parapluie est choisie dans une stratégie de conservation parce que protéger son habitat peut aussi bénéficier à d’autres espèces. Ces trois rôles ne sont pas synonymes.
La restauration écologique cherche à orienter une trajectoire vers un état souhaité et défini, par exemple retrouver certaines propriétés d’une prairie ouverte. La référence peut combiner des documents historiques et des sites comparables, avec leurs limites. Une photographie renseigne la couverture végétale visible à sa date ; elle ne restitue pas toutes les espèces, les pratiques passées ou les processus du sol.
Le dossier fictif compare A et B, deux placettes de prairie de 100 m² observées le 15 juin 2026. Une placette de référence de même surface, documentée par une photographie et un relevé comparable, présente 70 % de couverture herbacée. A atteint 35 %, B 60 % ; chacune compte huit espèces végétales recensées. B est plus proche de la référence de couverture, mais l’égalité de richesse ne donne pas l’identité des espèces.
L’objectif discuté est de retrouver les propriétés d’un milieu ouvert. On peut comparer plusieurs façons de suivre cet objectif : observer seulement la couverture, associer couverture et composition, ou ajouter un indicateur de processus si celui-ci fait partie du résultat recherché. Un suivi aux échéances fictives d’un, trois et six ans permettrait de décrire une trajectoire. Ces échéances sont choisies pour l’exercice, pas présentées comme une durée universelle de restauration.
Une carte représente une continuité entre chaque placette et une prairie voisine, sans mesure de passage. Elle suggère une voie possible de colonisation, mais une attribution demanderait des observations adaptées et l’examen d’autres causes. Une couverture rapprochée de la référence avec une composition divergente ferait réexaminer le choix des indicateurs. Le dossier apprend à argumenter un objectif et un suivi, sans décider d’une intervention réelle.
Voir pour comprendre
Comparer deux prairies à une référence
Dossier fictif : organiser une décision révisable.
| Indicateur | Référence | A | B |
|---|---|---|---|
| Surface | 100 m² | 100 m² | 100 m² |
| Couverture herbacée | 70 % | 35 % | 60 % |
| Richesse végétale | Non fournie | 8 espèces | 8 espèces |
| Connectivité | Pas de déplacement mesuré | carte seule | carte seule |
Lis le schéma. Comparer couverture, richesse et connectivité comme des questions distinctes.
B est plus proche de 70 % de couverture ; richesse égale et carte de corridor ne suffisent pas à expliquer la trajectoire.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionQue permet de discuter le dossier des prairies A et B ?
Observations
- A, B et la placette de référence couvrent chacune 100 m² ; relevés comparables du 15 juin 2026 dans ce dossier synthétique.
- Couverture herbacée de la référence : 70 %, avec photographie et relevé ; objectif discuté : propriétés d’une prairie ouverte.
- Couverture A : 35 %, B : 60 % ; huit espèces végétales recensées dans chacune, sans listes d’identités fournies.
- Une carte textuelle indique pour A et B une continuité vers une prairie voisine, mais aucun franchissement n’est observé ; suivi prospectif proposé à un, trois et six ans.
Hypothèses
- La couverture de B est plus proche de la référence.
- Même richesse peut cacher des compositions différentes.
- Le corridor peut contribuer à la connectivité, sans déplacement établi.
Preuves à fournir
- A est à 35 points de la référence ; B à 10.
- La richesse seule ne mesure pas la couverture.
- Composition et déplacements ne sont pas fournis.
- Des suivis aux délais annoncés permettraient une révision.
Analyse guidée
L’écart de couverture à la référence est de 70 − 35 = 35 points de pourcentage pour A et de 70 − 60 = 10 points pour B. B est plus proche pour cet indicateur ; cela ne prouve pas une trajectoire de restauration sur la base de cette seule date. Les huit espèces de chaque placette ne garantissent pas une même composition. Le suivi pertinent dépend de l’objectif : couverture et identité des plantes répondent à des questions complémentaires. La continuité figurée sur la carte ouvre une hypothèse de déplacement, pas une explication démontrée.
Diagnostic d’erreur
Indice observéDéclarer B restaurée ou attribuer sa couverture au corridor.
CauseUn indicateur, une carte et une trajectoire sont confondus.
Correction expliquée
Écris que B est plus proche de la référence de couverture. Ajoute composition, franchissement et suivi comme preuves nécessaires.
Étape du cours · 5 à 10 min
Transférer une trajectoire vers un autre milieu
Pour transférer un raisonnement, conserve les questions mais redéfinis leurs objets. Quel milieu est étudié, quelle perturbation a eu lieu, quels organismes sont recensés et à quelles dates ? Les propriétés suivies doivent rester les mêmes pour comparer avant et après. Un résultat obtenu dans des mares ne devient pas une prévision automatique pour un sous-bois.
Dans le scénario synthétique suivant, une tempête touche deux placettes F et G de sous-bois, chacune de 100 m². Les espèces végétales sont recensées avec la même méthode et le même effort un mois avant, deux jours après, puis six mois après la tempête. Le décompte porte sur les espèces détectées par ce protocole, pas sur un inventaire de tous les organismes du sous-bois.
Avant la tempête, F et G comptent dix espèces végétales recensées. Deux jours après, F en compte huit et G quatre. Les variations relatives sont (8 − 10) / 10 = −20 % et (4 − 10) / 10 = −60 %. F a donc mieux limité la baisse de richesse lors du premier relevé. Cette comparaison de résistance concerne la richesse détectée dans ces deux placettes.
Six mois après, les deux placettes comptent à nouveau dix espèces végétales recensées. Ce retour à la valeur initiale soutient une résilience de la richesse dans le scénario. Il ne permet pas de comparer leur vitesse exacte de récupération : entre le premier et le dernier relevé, aucun point intermédiaire n’est fourni. G a pu revenir plus tôt ou plus tard que F.
Les listes d’espèces ne sont pas fournies : certaines espèces initiales peuvent avoir disparu et d’autres les remplacer. La composition ne peut donc pas être dite identique. De même, aucune mesure de production, de pollinisation ou de décomposition n’est donnée. Ajouter ces indicateurs permettrait de discuter d’autres propriétés, sans les déduire du seul nombre d’espèces.
La réponse finale articule ainsi une variation et sa portée : F résiste davantage pour la richesse recensée ; à six mois, F et G en retrouvent la valeur initiale. L’identité des espèces, les processus et les dates exactes de retour restent à étudier. Cette façon de conclure relie les notions du cours à des résultats contrôlables, puis indique la preuve utile pour élargir l’explication.
Voir pour comprendre
Deux trajectoires de richesse après une tempête
Scénario synthétique : placettes de 100 m², même méthode et mêmes dates.
| Moment | F | G | Conclusion |
|---|---|---|---|
| Un mois avant | 10 espèces végétales | 10 espèces végétales | Référence de richesse |
| Deux jours après | 8 espèces ; −20 % | 4 espèces ; −60 % | F limite davantage la baisse |
| Six mois après | 10 espèces végétales | 10 espèces végétales | Retour de la richesse recensée |
| Données absentes | Listes, mesures intermédiaires, processus | Listes, mesures intermédiaires, processus | Pas de vitesse exacte de retour |
Lis le schéma. Comparer perte relative, retour et propriétés absentes.
F perd 20 %, G 60 % ; les deux reviennent à dix espèces végétales à six mois.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionQue permettent les trajectoires F et G ?
Observations
- F et G sont deux placettes synthétiques de sous-bois de 100 m² ; même méthode et même effort de recensement végétal.
- Un mois avant une tempête, dix espèces végétales sont recensées dans chaque placette.
- Deux jours après la tempête : huit espèces dans F et quatre dans G.
- Six mois après : dix espèces dans chacune ; aucune liste d’espèces, mesure intermédiaire ou mesure de processus n’est fournie.
Hypothèses
- F résiste davantage pour la richesse.
- Les deux montrent une résilience de richesse à six mois.
- Composition et processus peuvent différer.
Preuves à fournir
- F perd 20 %, G 60 %.
- Les deux reviennent à dix espèces.
- Même effort de recensement est annoncé.
- Aucun processus n'est mesuré.
Analyse guidée
F perd deux espèces sur dix, soit 20 %, et G six sur dix, soit 60 %. F limite davantage cette baisse de richesse. À six mois, chaque décompte revient à dix : cela soutient une résilience de cet indicateur. Il est impossible de classer la vitesse exacte de retour sans relevés intermédiaires, de comparer les identités sans listes ou de conclure sur la décomposition sans mesure de ce processus.
Diagnostic d’erreur
Indice observéConclure que G a retrouvé à la fois sa richesse, sa composition et tous ses processus.
CauseLe retour de richesse est confondu avec composition et processus.
Correction expliquée
Conclure seulement sur la richesse, puis demander liste d'espèces et indicateur de processus.
Poursuivre avec l’abonnement
Comprendre les interactions et suivre une trajectoire
Étudie les sept cas corrigés, les grilles de lecture et le réseau commenté.
Analyse les six mesures de litière, résous des dossiers de transfert et entraîne-toi avec les questions corrigées et les cartes.
21 questions · 21 cartes. La reprise de ce cours est enregistrée localement dans ton navigateur.
Voir les offres Déjà abonné ? Se connecterVérifier et prolonger
Sources du cours
Édition Maxdecours · Vérifié le .
Spécialité biologie-écologie, Terminale de la voie générale agricole : fonctionnement et dynamique des écosystèmes.
- Programme de l’enseignement de spécialité de biologie-écologie de première et terminale généraleMinistère de l’Agriculture, ChloroFil · consulté le 2026-09-09
- Arrêté du 23 juillet 2019 fixant le programme de biologie-écologieLégifrance · consulté le 2026-09-08
- Cadrage de l'épreuve terminale de biologie-écologie à compter de la session 2024Bulletin officiel du ministère de l'Agriculture · consulté le 2026-09-08
- Arrêté du 19 juin 2026 sur le choix entre biologie-écologie et sciences de la vie et de la TerreLégifrance · consulté le 2026-09-08
- Évaluation des compétences expérimentales en biologie-écologieChloroFil, ministère de l'Agriculture · consulté le 2026-09-08
- Sujet zéro et grilles de l'épreuve écrite de biologie-écologieInspection de l'enseignement agricole, Chlorofil · consulté le 2026-08-21
- Ecology of Ecosystems, Biology 2e, 46.1OpenStax, Rice University · consulté le 2026-09-09
- Energy Flow through Ecosystems, Biology 2e, 46.2OpenStax, Rice University · consulté le 2026-09-09
- Does regional diversity recover after disturbance? A field experiment in constructed pondsWoods, Biro, Yang et Smith, PeerJ 4:e2455, 2016 · consulté le 2026-09-09
© 2026 Maxdecours.com · Comprendre et progresser