
Biologie-écologie · Terminale
Fragmentation, perturbations et évolution de la biodiversité
Les activités humaines peuvent modifier la surface et la configuration des habitats, les conditions physiques et les interactions entre organismes. Ces pressions agissent sur arrivées, survie et reproduction, mais leurs effets dépendent des organismes, de la matrice et du contexte.
Explications et exemples en accès libre. Ateliers, quiz et cartes avec l’abonnement.
Prévoir mon tempsExplications et exemples en accès libre
Une première étude des explications, schémas, exemples résolus et erreurs expliquées. Les activités, productions, quiz et cartes réservés à l’abonnement ne sont pas comptés ici.
- Comprendre3543 mots d’explication et 7 schémas et 1 document
- 24 à 39 min
- Étudier les exemples et les erreurs7 cas, exemples et activités guidés
- 21 à 35 min
Étude du cours en accès libre, environ45 min à 1 h 15
Voir le calcul et le temps par étape
Le calcul suit automatiquement les explications et les tâches présentes dans le cours. Ses coefficients sont des repères de planification, pas des temps mesurés auprès d’élèves.
- Lecture active : 3543 mots, à raison de 160 à 220 mots par minute.
- Schémas : 7, avec 1 à 2 min pour lire chacun.
- Cas scientifique : 7 × 3 à 5 min.
- 5 outils de référence (1 à 2 min chacun).
- Distinguer perte d’habitat, fragmentation et effet de bord7 à 13 min
- Relier les filtres aux dynamiques de population6 à 11 min
- Comparer des générations pour distinguer plasticité et évolution6 à 11 min
- Comparer des fréquences sans inventer un mécanisme6 à 10 min
- Analyser des pressions combinées sans les confondre6 à 11 min
- Évaluer le potentiel évolutif sous des pressions humaines6 à 11 min
- Assembler des preuves écologiques et évolutives5 à 10 min
Les sous-totaux sont arrondis à la minute, puis additionnés. La fourchette totale est élargie aux cinq minutes voisines. Les étapes ci-dessus comprennent leurs explications et exemples ; elles ne s’ajoutent pas une seconde fois au total.
Adapte ce repère à tes acquis et au soin apporté aux exercices. Les pauses, les reprises, la consultation des sources externes et les révisions suivantes s’ajoutent selon tes besoins.
Avec les ateliers, les analyses documentaires, le quiz et les cartes : environ 1 h 55 à 3 h 15, à répartir sur plusieurs séances.
Objectifs du cours
Ce que tu vas savoir faire
- Distinguer perte d’habitat, fragmentation, effet de bord et connectivité fonctionnelle à partir d’une même échelle spatiale.
- Relier changement climatique, pollution, espèce exotique invasive et fragmentation à des mécanismes démographiques possibles, sans confondre association observée et cause établie.
- Traiter des répétitions de fréquences phénotypiques : conserver les valeurs, calculer moyenne et écart-type, puis en limiter l’interprétation.
- Comparer une différence entre générations en environnement commun à une différence possiblement plastique, en mobilisant l’exemple de Franks.
- Lire une hypothèse de parenté par ses caractères et ses nœuds, puis articuler biodiversité, pressions et potentiel évolutif sans promettre une adaptation automatique.
Repère visuel Biologie-écologie
De la pression au résultat interprétable
Une même différence peut être écologique, démographique ou évolutive : les données nécessaires ne sont pas les mêmes.
- 1DécrireDistingue surface, fragmentation, bordure et matrice.
- 2ComparerConserve groupes, unités, moyennes et dispersions.
- 3ExpliquerTeste plasticité, conditions locales et mécanismes évolutifs.
- 4ConclureFormule un résultat proportionné aux données et indique la preuve manquante.
La fragmentation et les changements globaux posent des questions écologiques et évolutives liées, mais chacune demande ses propres preuves.
Étape du cours · 7 à 13 min
Distinguer perte d’habitat, fragmentation et effet de bord
Un habitat est un ensemble de conditions dans lequel une population trouve, à une période donnée, les ressources et interactions compatibles avec son maintien. Avant de dire qu’il est dégradé, il faut annoncer l’organisme concerné, la surface considérée, la période et l’indicateur choisi. Une même zone peut convenir à une espèce végétale, être traversée par un animal et ne pas offrir les conditions de reproduction à un autre organisme. L’habitat n’est donc pas une simple tache de couleur sur une carte.
La perte d’habitat correspond à une diminution de la quantité d’habitat disponible dans le périmètre étudié. La fragmentation décrit une modification de sa configuration : une surface peut être répartie en plusieurs fragments séparés, parfois sans diminution de surface totale. Les deux phénomènes peuvent se produire ensemble, mais ils répondent à des questions distinctes. Comparer seulement le nombre de fragments sans annoncer la surface totale peut masquer une perte d’habitat ; comparer seulement la surface peut masquer une modification des distances et des lisières.
L’effet de bord désigne une différence de conditions ou de réponses observée près d’une limite entre deux milieux. Une lisière peut modifier lumière, vent, humidité, ressources ou interactions, mais elle n’a pas un effet identique pour toutes les espèces. Sa portée dépend de la largeur concernée, de la matrice voisine, de la saison et de l’organisme étudié. Il faut donc mesurer une condition ou une réponse à des distances annoncées, plutôt que d’employer « bord » comme explication automatique.
À surface égale, la forme et le morcellement changent la longueur des limites. Un carré unique de 200 m de côté couvre 4 ha et a un périmètre de 800 m. Quatre carrés distincts de 100 m de côté couvrent aussi 4 ha, mais totalisent 1 600 m de périmètre. Cette géométrie ne prouve aucun effet biologique ; elle indique pourquoi un dossier peut devoir distinguer quantité d’habitat, distance entre fragments et proportion de zones proches d’une lisière.
L’échelle spatiale change l’interprétation. Une bande herbacée peut être une rupture pour une espèce peu mobile et une distance négligeable pour une autre. De même, un relevé de quelques jours peut décrire une présence locale sans renseigner une recolonisation saisonnière ou une persistance sur plusieurs années. Une comparaison honnête précise donc si elle porte sur une population, une communauté, un fragment ou un paysage, et si l’indicateur concerne présence, abondance, survie ou reproduction.
Pour analyser un dossier, sépare quatre questions : quelle quantité d’habitat est disponible, comment est-elle configurée, quelles conditions changent près des limites et quelle réponse biologique est observée. Cette démarche ne rend pas les pressions moins importantes ; elle évite au contraire de leur attribuer le même mécanisme sans preuve. Elle aide aussi à choisir une comparaison utile, par exemple entre surfaces semblables configurées différemment, ou entre distances définies à une même lisière.
Voir pour comprendre
Comparer quantité d’habitat, configuration et lisières
La grille sépare les variables géométriques du schéma fictif et les réponses biologiques qui restent à mesurer.
| Configuration fictive | Surface totale | Périmètre total | Ce que le document ne démontre pas |
|---|---|---|---|
| A : un carré de 200 m | 4 ha | 800 m | La réponse d’une population à un grand fragment |
| B : quatre carrés de 100 m | 4 ha | 1 600 m | Un effet de bord ou un isolement biologique |
| C : deux carrés de 100 m | 2 ha | 800 m | La part de perte due à la seule configuration |
| Mesure à ajouter | Population et période | Distance ou matrice | Survie, abondance, reproduction ou déplacement |
Lis le schéma. Compare d’abord les surfaces et les périmètres, puis vérifie quelles variables restent confondues avant de conclure sur une population.
A et B conservent 4 ha mais changent la configuration ; C réduit la surface. Aucun schéma seul ne démontre un effet biologique.
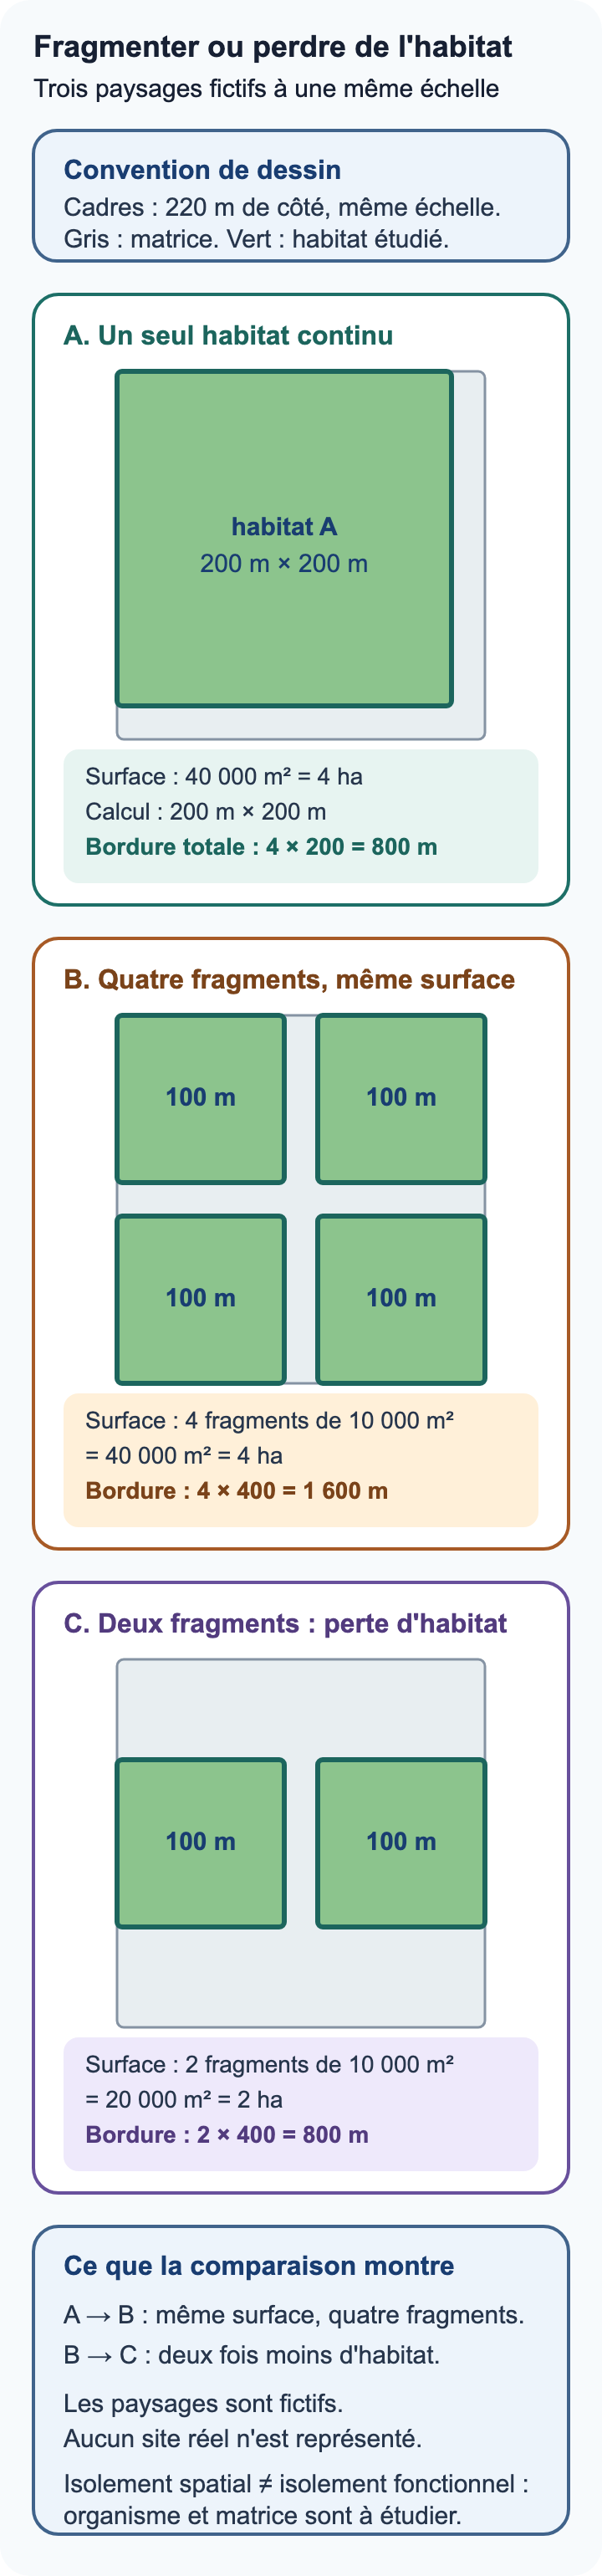
A et B ont la même surface d'habitat, mais B la répartit en quatre fragments et double la bordure totale. Entre B et C, la surface passe de quatre à deux hectares.
Situation hypothétique d'entraînement, non localisée. Les surfaces et bordures sont des calculs géométriques sur les carrés dessinés à l'échelle déclarée. Le schéma distingue fragmentation sans perte de surface et perte d'habitat, sans conclure à lui seul sur l'isolement fonctionnel ni sur la réponse d'un organisme : la matrice et l'organisme étudié comptent.
Maxdecours, dessin pédagogique original · Illustration originale Maxdecours · vérifié le 11/09/2026
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionQue permet de comparer un document géométrique fictif sur trois configurations d’habitat, sans suivi d’organismes ?
Observations
- Le document didactique fictif A représente un carré de 200 m sur 200 m : sa surface est de 40 000 m², soit 4 ha, et son périmètre est de 800 m.
- Le document B représente quatre carrés séparés de 100 m sur 100 m : leur surface totale est aussi de 40 000 m², soit 4 ha, tandis que leurs périmètres totalisent 1 600 m.
- Le document C représente deux carrés séparés de 100 m sur 100 m : leur surface totale est de 20 000 m², soit 2 ha, et leurs périmètres totalisent 800 m.
- Aucun des trois schémas ne fournit d’espèce, de distance réellement parcourue, d’abondance, de survie, de reproduction ou de mesure des conditions de lisière.
Hypothèses
- A et B permettent d’étudier l’hypothèse qu’une configuration différente, à surface totale égale, est associée à des réponses biologiques différentes pour un organisme défini.
- La comparaison entre A et C associe à la fois une quantité d’habitat différente et une configuration différente ; elle ne permettrait pas d’isoler ces deux facteurs sans autres cas.
- Le périmètre plus long de B rend plausible une question sur les lisières, qui demanderait des mesures de conditions ou de réponses à des distances définies.
Preuves à fournir
- A et B ont chacun 4 ha, mais B totalise deux fois plus de périmètre : la quantité est maintenue tandis que la configuration change.
- C ne conserve que 2 ha, ce qui introduit une perte d’habitat par rapport à A et B.
- Les périmètres de A et C sont identiques, alors que leurs surfaces et leurs nombres de fragments diffèrent.
- L’absence de donnée biologique limite le document à une comparaison de géométrie et à la formulation d’hypothèses testables.
Analyse guidée
Les trois configurations sont fictives et servent à séparer des variables. A et B ont exactement 4 ha : une différence ultérieure entre elles ne pourrait pas être attribuée à une différence de surface totale, mais il faudrait encore documenter l’isolement, la matrice et une réponse biologique. B possède 1 600 m de périmètre contre 800 m pour A ; cette différence rend pertinente une question sur la part de l’habitat proche d’une lisière, non l’affirmation qu’un effet de bord existe. C ne mesure que 2 ha : la comparaison avec A ou B mélange une perte de quantité et un changement de configuration. Le schéma ne désigne aucune espèce ni aucun déplacement. Il ne démontre donc ni extinction, ni recolonisation, ni baisse de diversité ; il organise une comparaison future où l’organisme, l’échelle et l’indicateur devront être définis.
Diagnostic d’erreur
Indice observéÉcrire que B est forcément plus dégradé que A parce qu’il comporte quatre fragments et davantage de périmètre.
CauseUne différence de géométrie est transformée en effet biologique sans organisme, réponse mesurée, distance de lisière ni information sur la matrice.
Correction expliquée
Décris d’abord le fait : A et B ont 4 ha, tandis que B totalise 1 600 m de périmètre contre 800 m. Propose ensuite une hypothèse sur des lisières ou des déplacements pour une population annoncée, puis demande une mesure adaptée.
Étape du cours · 6 à 11 min
Relier les filtres aux dynamiques de population
Les pressions humaines n’agissent pas toutes au même moment dans la trajectoire d’une population. Un filtre de dispersion limite l’arrivée d’individus, de graines ou d’autres propagules vers un site. Un filtre abiotique limite la compatibilité avec des conditions physiques, telles que l’humidité, la température ou la qualité d’un sol. Un filtre biotique dépend d’interactions, par exemple compétition, prédation, parasitisme ou facilitation. Une absence observée ne permet pas, à elle seule, de désigner l’un de ces filtres.
Ces filtres peuvent se traduire par des mécanismes démographiques distincts. Une population peut recevoir moins d’individus, subir une mortalité plus forte, produire moins de descendants ou recoloniser moins souvent un milieu. L’abondance observée à une date est un résultat possible de ces processus, non leur synonyme. Deux sites avec le même effectif peuvent avoir des trajectoires différentes si l’un reçoit régulièrement des arrivées et l’autre dépend seulement de rares reproductions locales.
La fragmentation peut modifier la dispersion entre fragments et les conditions rencontrées au voisinage des lisières. Elle n’interdit pas universellement les déplacements : l’effet dépend de la matrice, de la distance, des traits de l’organisme et du moment du cycle de vie. De même, une zone atteinte par un polluant ou par une sécheresse peut agir d’abord comme filtre abiotique, puis modifier les interactions biotiques. Une explication utile suit donc une chaîne précise au lieu de traiter toutes les pressions comme une même cause.
Haddad et ses collègues ont synthétisé 76 études issues des cinq expériences de fragmentation les plus anciennes, avec des données disponibles jusqu’au 31 janvier 2014. Leur lecture compare réduction de surface, isolement accru et lisières, puis examine notamment déplacements, abondance, recolonisation, richesse, composition et fonctionnement. Dans les dispositifs inclus, ces contrastes expérimentaux apportent un appui à l’étude de mécanismes dans leurs conditions propres. Les effets rapportés peuvent persister ou apparaître avec délai ; la synthèse ne fournit pas pour autant une prédiction chiffrée pour un fragment local ni une cause unique applicable à toutes les espèces.
Pour passer d’un mécanisme à une conclusion, relie chaque observation à son niveau. Un nombre plus faible de plantules peut être compatible avec un filtre de dispersion, avec une germination limitée par le sol, avec une herbivorie, ou avec plusieurs mécanismes simultanés. Une baisse de richesse et une baisse d’abondance ne sont pas non plus le même constat. Relever séparément arrivées, survie, reproduction et composition permet d’identifier ce qui est documenté et ce qui reste une hypothèse.
Une analyse solide annonce ainsi la pression considérée, le filtre proposé, la variable démographique et l’indicateur. Elle indique ensuite les explications concurrentes : par exemple la distance, l’humidité, la ressource disponible ou une interaction. Cette manière de raisonner ne banalise pas les changements globaux. Elle rend visible où une action humaine peut intervenir dans une chaîne écologique et quelles observations seraient nécessaires pour examiner sa portée dans une population réelle.
Voir pour comprendre
Des pressions aux réponses démographiques observables
La grille distingue les filtres proposés, les mécanismes démographiques et les indicateurs nécessaires pour les examiner.
| Pression ou condition | Filtre possible | Variable démographique | Observation à ne pas confondre |
|---|---|---|---|
| Isolement entre fragments | Dispersion | Arrivée ou recolonisation | Une seule présence à une date |
| Humidité ou température modifiée | Abiotique | Germination ou survie | Une cause unique déjà prouvée |
| Compétition ou herbivorie | Biotique | Survie ou reproduction | La seule abondance finale |
| Suivi de communauté | Plusieurs filtres possibles | Composition et abondance | Une prédiction universelle locale |
Lis le schéma. Pars de la pression décrite, puis suis un seul filtre vers une variable démographique et une observation possible.
Une abondance mesurée à une date ne permet pas d’identifier seule un filtre : il faut distinguer arrivées, survie, reproduction et recolonisation.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionQue permet d’apprendre la synthèse de Haddad et al. sur les mécanismes de fragmentation, sans prédire un site particulier ?
Observations
- L’article de Haddad et al., publié en 2015, synthétise 76 études provenant des cinq expériences de fragmentation les plus anciennes, à partir de données disponibles jusqu’au 31 janvier 2014.
- Les comparaisons de la synthèse distinguent réduction de surface, augmentation de l’isolement et effet de bord au lieu de traiter la fragmentation comme une variable unique.
- Les résultats examinés incluent déplacements, abondance, recolonisation, richesse, composition des communautés et fonctionnement des écosystèmes.
- Les auteurs décrivent des effets pouvant se prolonger ou apparaître avec délai, et signalent que les conséquences génétiques et éco-évolutives demandent des investigations dédiées.
Hypothèses
- Une pression de fragmentation peut agir sur la dynamique d’une population par plusieurs filtres et non seulement par une diminution immédiate d’abondance.
- Des réponses retardées sont compatibles avec l’idée qu’un relevé bref peut manquer une part de la trajectoire d’un système.
- Dans un nouveau site, la matrice, les traits d’espèce et les autres pressions peuvent modifier ou contredire le mécanisme attendu.
Preuves à fournir
- La diversité des résultats étudiés oblige à distinguer dispersion, démographie, composition et fonctionnement plutôt qu’à employer un indicateur unique.
- La séparation entre réduction de surface, isolement et bord guide la construction de comparaisons où ces variables sont annoncées.
- Les expériences réunies établissent des contrastes contrôlés dans leurs contextes ; leur mise en commun ne transforme pas ces résultats en prévision pour un nouveau site.
- Les limites signalées par les auteurs empêchent de déduire, pour une population locale, un destin génétique ou une valeur universelle d’effet.
Analyse guidée
La synthèse de Haddad et al. sert ici à organiser une question, non à fournir un verdict local. Les 76 études des cinq expériences permettent de voir que la réduction de surface, l’isolement accru et les lisières doivent être distingués. Les réponses suivies sont elles aussi différentes : un déplacement, une recolonisation, une abondance ou une composition ne mesurent pas le même mécanisme. Les effets qui apparaissent avec délai invitent à préciser la durée d’un suivi avant d’interpréter une absence de changement immédiat. Cependant, l’article rassemble des contextes écologiques variés ; il ne permet pas de prédire le nombre d’individus dans un fragment donné. Les auteurs indiquent en outre que les conséquences génétiques demandent des recherches propres. Dans un dossier local, il faut donc choisir un filtre, une variable démographique et un indicateur, puis conserver les particularités de la matrice, de l’espèce et des autres pressions.
Diagnostic d’erreur
Indice observéAffirmer qu’un fragment local perdra nécessairement la moitié de ses espèces parce que l’article traite de fragmentation.
CauseUne synthèse de mécanismes et de contextes différents est changée en prédiction chiffrée pour un site qui n’a ni espèce, ni matrice, ni durée de suivi définies.
Correction expliquée
Utilise l’article pour formuler ce qui doit être distingué : surface, isolement, lisière, indicateur et délai. Pour le site étudié, mesure ensuite la réponse annoncée et discute les pressions locales sans importer une valeur universelle.
Étape du cours · 6 à 11 min
Comparer des générations pour distinguer plasticité et évolution
Un même génotype peut produire des phénotypes différents selon les conditions : c’est la plasticité phénotypique. Ainsi, observer une floraison plus précoce une année ne démontre pas encore une évolution. Cette différence peut venir de l’eau, de la température, de l’âge des organismes ou d’autres conditions reçues durant leur vie. Une évolution suppose ici une différence transmissible entre générations, donc une composante génétique du changement observé.
Une comparaison en environnement commun aide à séparer ces explications. Des organismes issus de générations différentes sont alors placés dans des conditions identiques au moment où le caractère est mesuré. Si une différence persiste, elle ne s’explique pas seulement par le milieu immédiat de mesure. Elle reste toutefois à interpréter avec le système étudié, les générations comparées et les autres informations disponibles ; un environnement commun ne transforme pas toute différence en preuve universelle.
Franks, Sim et Weis ont utilisé des graines de Brassica rapa recueillies en 1997, avant la période sèche, puis en 2004 dans deux populations. Ils ont d’abord produit une génération F1 afin de réduire des effets liés à l’état de la graine, au stockage et au milieu maternel. Les groupes issus des croisements 1997 × 1997, 1997 × 2004 et 2004 × 2004 ont été élevés simultanément et comparés dans les mêmes environnements, avec trois durées de saison. Cette architecture rend plus solide la distinction entre réponse plastique et divergence entre générations.
Dans la population du site humide et le traitement à saison courte, le tableau 1 donne des moyennes ajustées de date de première floraison, suivies de leur erreur standard : 53,4 ± 1,01 jours pour les ancêtres, 50,4 ± 0,93 pour les hybrides et 46,2 ± 0,93 pour les descendants. Entre ancêtres et descendants, l’écart est donc de 7,2 jours dans ce traitement précis. Ces ± sont des erreurs standard des moyennes ajustées, et non des écarts-types de répétitions. L’ordre intermédiaire des hybrides est compatible avec une composante génétique additive de la divergence, mais il ne désigne pas à lui seul un allèle particulier.
L’étude compare aussi la survie selon les générations, les populations et les durées de saison. Pour la population du site humide soumise à une saison courte, le texte rapporte 50 % de survie chez les ancêtres, 60 % chez les hybrides et 75 % chez les descendants. Ces proportions de survie sont distinctes des dates de floraison. Les relier demande de garder le traitement et l’unité annoncés. On ne mélange donc ni ces pourcentages avec les moyennes de jours, ni l’écart de 7,2 jours du tableau avec d’autres écarts cités pour d’autres populations ou traitements.
Le résultat porte sur une plante annuelle, deux populations, des graines collectées en 1997 et 2004, et une sécheresse régionale survenue de 2000 à 2004. Il soutient, dans ce cadre, une divergence héréditaire de calendrier de floraison associée à des conditions plus sèches. Il donne un exemple documentaire précis pour discuter comment une population peut répondre à une fluctuation climatique, tout en restant propre à l’espèce, aux populations et aux conditions comparées.
Voir pour comprendre
Ce que compare un environnement commun
Lecture méthodologique de l’étude de Franks, Sim et Weis : les conclusions restent attachées à la population et au traitement.
| Élément comparé | Ce que le dispositif limite | Indice obtenu | Conclusion encore exclue |
|---|---|---|---|
| Ancêtres 1997 et descendants 2004 | Le seul constat visuel d’une année à l’autre | Deux générations définies | Une cause génétique démontrée sans contrôle |
| Génération F1 | Effets de stockage et de milieu maternel | Graines comparées après une étape commune | Suppression de toute autre limite |
| Environnements communs | Différence due seulement au milieu immédiat | Écart persistant entre générations | Résultat valable pour toutes les espèces |
| Hybrides entre générations | Lecture binaire ancêtres ou descendants | Valeur intermédiaire possible | Identification d’un allèle particulier |
Lis le schéma. Lis d’abord l’origine des générations, puis les conditions rendues communes et enfin la portée de la différence observée.
Une comparaison contrôlée réduit certaines explications environnementales ; elle n’identifie pas automatiquement un gène ni une cause globale.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionQue permet de conclure la comparaison de générations de Brassica rapa en environnement commun, et quelle explication reste insuffisante ?
Observations
- Des graines ont été recueillies dans deux populations en 1997, avant la sécheresse régionale, puis en 2004.
- Une génération F1 a été produite avant la comparaison afin de réduire les effets de stockage, d’état des graines et de milieu maternel.
- Les groupes F1 issus des croisements 1997 × 1997, 1997 × 2004 et 2004 × 2004 ont été comparés simultanément dans des environnements communs comportant trois durées de saison.
- Au site humide, dans le traitement à saison courte, les moyennes ajustées de première floraison sont 53,4 ± 1,01 jours pour les ancêtres, 50,4 ± 0,93 pour les hybrides et 46,2 ± 0,93 pour les descendants ; les ± sont des erreurs standard.
- Dans ce même traitement, l’écart ancêtres-descendants est de 7,2 jours ; les survies rapportées sont 50 % chez les ancêtres, 60 % chez les hybrides et 75 % chez les descendants.
Hypothèses
- La floraison plus précoce observée chez les descendants résulte seulement de conditions de croissance différentes reçues en 2004.
- Une composante héréditaire différencie les générations et contribue à une floraison plus précoce des descendants dans le traitement étudié.
Preuves à fournir
- La mise en environnement commun réduit l’explication par les seules conditions immédiates de mesure.
- La génération F1 limite des effets maternels et de stockage qui auraient pu accompagner les graines de 1997 et 2004.
- La position intermédiaire des hybrides apporte un indice compatible avec une contribution génétique additive.
- Pour attribuer la divergence à un variant précis, il faudrait des données génétiques supplémentaires ; pour généraliser, il faudrait d’autres populations, espèces et contextes.
Analyse guidée
Les descendants fleurissent en moyenne 7,2 jours plus tôt que les ancêtres dans le seul couple population-traitement explicitement retenu. Comme les générations sont comparées dans un environnement commun après une génération F1, l’hypothèse d’une simple plasticité due au milieu reçu au moment de la mesure devient insuffisante. L’hybride intermédiaire renforce l’idée d’une composante héréditaire. La conclusion reste bornée : elle décrit une divergence de calendrier dans ce système et ce traitement, sans identifier un gène ni attribuer la sécheresse à une cause anthropique.
Diagnostic d’erreur
Indice observéConclure que toute plante fleurira plus tôt dès qu’une année est sèche.
CauseLa comparaison temporelle, le résultat d’une annuelle et le mécanisme général sont confondus ; le cadre précis de l’étude disparaît.
Correction expliquée
Nommer les générations, le site et le traitement, puis expliquer ce qu’apporte l’environnement commun. Conserver comme limites l’absence d’universalité et l’absence d’identification d’un variant précis.
Étape du cours · 6 à 10 min
Comparer des fréquences sans inventer un mécanisme
Une fréquence indique la part d’individus qui possèdent un caractère dans l’ensemble observé. Elle se calcule en divisant le nombre d’individus porteurs par le nombre total observé, puis en multipliant par 100. Le caractère peut être une coloration, une forme ou un comportement défini par un critère. Un pourcentage décrit ce critère : il ne devient une fréquence allélique que si les données génétiques et le mode de comptage le permettent.
Pour comparer des sous-populations, on conserve une ligne par répétition avec son identifiant, sa condition et sa valeur. La moyenne arithmétique des fréquences donne le même poids à chaque répétition. Elle répond à la question « quelle est la fréquence moyenne parmi ces répétitions ? ». Elle ne répond pas nécessairement à « quelle proportion de tous les individus possède le caractère ? », car les effectifs observés peuvent différer entre répétitions.
Un exemple indépendant montre l’importance du dénominateur : huit porteurs parmi dix individus représentent 80 %, et dix-huit parmi quatre-vingt-dix représentent 20 %. La moyenne des deux pourcentages est 50 %. En réunissant les individus, on compte pourtant 26 porteurs sur 100, soit 26 %. Les deux résultats sont correctement calculés mais décrivent des objets différents : deux répétitions également pondérées, ou cent individus.
L’écart-type d’échantillon décrit la dispersion des fréquences autour de leur moyenne. On calcule les écarts, on les élève au carré, on additionne, on divise par n − 1 puis on prend la racine carrée. Pour les quatre fréquences synthétiques 22, 24, 23 et 25 %, la moyenne est 23,5 %. La somme des carrés des écarts vaut 5, d’où un écart-type de √(5/3), environ 1,291 point de pourcentage. L’étendue vaut 3 points. Ces deux indicateurs ne sont pas interchangeables.
Dans un second groupe du même exercice synthétique, les fréquences 30, 22, 34 et 26 % ont une moyenne de 28 %. Leur écart-type est √(80/3), environ 5,164 points, et leur étendue 12 points. L’écart entre les moyennes est de 4,5 points de pourcentage. Un repère commun et les points individuels montrent à la fois le décalage des moyennes et la dispersion plus forte du second groupe. Cet écart n’est pas une hausse de 4,5 % au sens relatif.
Une dispersion plus forte entre répétitions n’identifie pas sa cause. Dérive, différences de milieu, plasticité du caractère et différences de mesure peuvent être compatibles avec une partie du résultat. Le nombre de répétitions et leur provenance déterminent la portée de la comparaison. Pour inférer un changement génétique, il faut des preuves portant sur l’hérédité ou les génotypes, et pour inférer une évolution temporelle, des générations ou dates comparables. L’écart-type n’est ni une preuve causale ni un intervalle de confiance.
Voir pour comprendre
Moyenne, dispersion et objet du calcul
Exercice synthétique A/B, indépendant des six répétitions réservées de l’atelier.
| Groupe ou question | Données et calcul | Résultat | Interprétation |
|---|---|---|---|
| Groupe A | 22 ; 24 ; 23 ; 25 % | Moyenne 23,5 % ; s = 1,291 point | Quatre répétitions, étendue 3 points |
| Groupe B | 30 ; 22 ; 34 ; 26 % | Moyenne 28 % ; s = 5,164 points | Quatre répétitions, étendue 12 points |
| Écart B − A | 28 − 23,5 | 4,5 points de pourcentage | Différence descriptive, pas une variation dans le temps |
| Exemple indépendant : tous les individus | (8 + 18)/(10 + 90) × 100 | 26 % de porteurs | Différent de la moyenne (80 + 20)/2 = 50 % |
Lis le schéma. Lis ensemble la moyenne, l’écart-type, l’étendue et ce qui est réellement compté.
Un même pourcentage peut décrire une répétition, une moyenne ou un ensemble d’individus.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionDeux groupes synthétiques diffèrent-ils surtout par leur fréquence moyenne, leur dispersion, ou les deux ?
Observations
- Exercice documentaire distinct de l’atelier : groupe A, quatre répétitions à 22, 24, 23 et 25 % ; groupe B, quatre répétitions à 30, 22, 34 et 26 %.
- Les valeurs décrivent la fréquence d’un même caractère observable, selon le même critère. A et B sont deux conditions fictives de comparaison, pas deux dates.
- Chaque répétition reçoit un poids égal. Les effectifs d’individus et les génotypes ne sont pas fournis.
- Aucune information n’établit l’affectation aléatoire des conditions ou l’hérédité du caractère.
Hypothèses
- Les deux groupes ont la même dispersion, avec seulement une moyenne décalée.
- Les deux groupes diffèrent par leur moyenne et par la dispersion de leurs répétitions.
Preuves à fournir
- La moyenne A est 94/4 ; la moyenne B est 112/4.
- Les sommes des carrés des écarts à la moyenne sont 5 pour A et 80 pour B.
- Les étendues sont 25 − 22 et 34 − 22 ; elles ne nécessitent aucune exclusion de valeur.
- Les dénominateurs des répétitions ne sont pas fournis : les moyennes de A et B ne permettent donc pas de calculer une fréquence regroupant tous les individus.
Analyse guidée
A a pour moyenne 23,5 % et pour écart-type d’échantillon √(5/3) = 1,290994… point. B a pour moyenne 28 % et pour écart-type √(80/3) = 5,163978… points. L’écart B − A est 4,5 points de pourcentage. B est donc à la fois plus élevé en moyenne et plus dispersé dans cet exercice. Les fréquences ne renseignent pas les effectifs totaux : on ne calcule pas une proportion globale de porteurs. Les groupes ne sont pas des dates et ne démontrent ni sélection ni dérive.
Diagnostic d’erreur
Indice observéUne copie écrit « le caractère a évolué de 4,5 % par dérive ».
CauseElle transforme deux groupes en chronologie, confond points et variation relative, puis attribue un mécanisme génétique à un caractère simplement observé.
Correction expliquée
Écrire : « La fréquence moyenne est supérieure de 4,5 points dans B, et ses répétitions sont plus dispersées. » Pour une interprétation évolutive, demander des générations comparables et des preuves d’hérédité ou de changement génétique.
Étape du cours · 6 à 11 min
Analyser des pressions combinées sans les confondre
Les changements climatiques modifient des conditions physiques sur des durées et à des échelles variables : température, disponibilité en eau, fréquence d’événements extrêmes ou calendrier saisonnier. Une population peut répondre par un déplacement de distribution, une variation de survie, de reproduction ou de phénologie, mais aucune de ces réponses n’est automatique. Pour décrire une pression climatique dans un dossier, il faut préciser la variable observée, la période de référence et le niveau biologique concerné, plutôt que de qualifier tout changement de climat d’effet direct sur une espèce.
Une pollution désigne l’introduction ou la présence d’une substance, d’énergie ou d’un agent qui modifie des conditions de milieu et peut affecter les organismes. Son effet dépend de sa nature, de son exposition, de la dose ou de l’intensité documentée, du milieu et de l’organisme. Une différence de composition entre deux sites ne prouve donc pas, à elle seule, que la pollution en est la cause. Il faut vérifier ce qui est effectivement mesuré et quelles autres pressions varient en même temps.
Le programme distingue des espèces envahissantes locales, dont certaines plantes adventices des cultures, et des espèces exotiques invasives. Une espèce locale qui se développe dans un contexte donné n’est pas automatiquement une espèce exotique ; une espèce introduite n’est pas automatiquement invasive. Pour employer ces mots correctement, le dossier doit documenter l’origine ou le statut concerné, l’expansion observée et les interactions ou conséquences étudiées. Cette précision évite de transformer une étiquette d’origine en explication écologique.
Les pressions se combinent parfois dans la même population. Une sécheresse peut modifier les ressources, un polluant peut changer une condition de milieu, et une nouvelle interaction biotique peut agir sur la survie ou la reproduction. Le résultat ne s’obtient pas nécessairement en additionnant trois effets isolés : les mécanismes peuvent se renforcer, se compenser ou agir à des moments différents. Une carte de cooccurrence ou deux mesures simultanées permettent de formuler une hypothèse de combinaison, pas d’attribuer instantanément une part de l’effet à chaque pression.
Raisonner sur la causalité consiste à chercher des comparaisons et des indices compatibles avec une explication, tout en conservant les alternatives. Des sites qui diffèrent simultanément par l’humidité, une exposition documentée et la composition d’une communauté ne permettent pas d’isoler ces facteurs par une seule différence d’abondance. Des suivis répétés, des variables consignées et des unités comparables renforcent l’analyse. Ils ne dispensent pas de préciser l’échelle à laquelle la conclusion reste valable.
Une bonne synthèse de pressions combinées suit une phrase simple : condition observée, organisme ou population concernée, réponse mesurée, mécanismes plausibles et information manquante. Elle permet d’expliquer pourquoi plusieurs pistes restent ouvertes sans réduire le cours à une liste de réserves. L’objectif est de comprendre les liens possibles entre activités humaines, filtres et dynamique des populations, puis de reconnaître les preuves qui seraient nécessaires avant de choisir une cause principale.
Voir pour comprendre
Garder une causalité proportionnée aux documents
La grille distingue une condition mesurée, un statut biologique, une réponse observée et la preuve manquante avant une attribution causale.
| Élément du dossier | Fait permis | Mécanisme à examiner | Conclusion interdite |
|---|---|---|---|
| Humidité ou température | Condition abiotique mesurée | Survie, ressource ou phénologie | Une cause unique déjà démontrée |
| Conductivité ou exposition | Différence environnementale décrite | Nature et durée de l’exposition | Le polluant précis sans analyse |
| Adventice locale | Statut local documenté | Interaction éventuelle à mesurer | Une exotique invasive par définition |
| Espèce exotique signalée | Origine annoncée | Expansion et conséquences observées | Une invasion ou une causalité prouvée |
Lis le schéma. Lis chaque ligne en séparant le fait observé du mécanisme proposé, puis repère la donnée qui permettrait de départager les pressions.
Une cooccurrence de climat, exposition et changement biologique ne répartit pas seule les causes. Le statut d’une espèce exige aussi des informations spécifiques.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionUn dossier comparant deux prairies permet-il d’attribuer un écart de fréquence de présence à une seule pression humaine ?
Observations
- Le dossier didactique hypothétique compare deux prairies de 2 ha, R et S. Il annonce quatre passages entre avril et juillet 2026, sans fournir de série de valeurs permettant de décrire une évolution temporelle.
- Lors du passage du 18 juillet 2026, douze quadrats fixes de 1 m² sont relevés dans chaque prairie avec le même protocole : V est notée dans 9 quadrats de R et dans 4 quadrats de S. Ces nombres décrivent une fréquence de présence à ce passage, pas une reproduction ni une survie individuelle.
- Au même passage et avec le même protocole, le document indique pour R une humidité moyenne du sol de 22 % et une conductivité d’un extrait d’eau du sol de 340 µS/cm ; pour S, il indique 12 % et 820 µS/cm, sans identifier de substance polluante.
- Une plante W est qualifiée d’adventice locale dans R ; une plante E est signalée comme exotique dans S, mais le dossier ne fournit ni son évolution d’abondance ni une conséquence attribuée à sa présence.
Hypothèses
- L’écart d’occurrence de V peut être compatible avec des conditions d’humidité, une exposition différente ou des interactions biotiques distinctes entre R et S.
- La plante W ne doit pas être renommée exotique invasive, et la seule origine exotique de E ne suffit pas à qualifier E d’invasive dans ce dossier.
- Les pressions présentes simultanément dans S peuvent agir ensemble, mais aucune observation ne répartit leur contribution à l’écart de V.
Preuves à fournir
- Le passage du 18 juillet fournit 9 quadrats sur 12 pour R et 4 sur 12 pour S, avec des quadrats fixes de même surface et le même protocole annoncés.
- L’humidité et la conductivité diffèrent entre les deux prairies, ce qui fournit au moins deux conditions concurrentes à examiner.
- Le document ne nomme pas de substance polluante, ne mesure ni survie ni fécondité et ne fournit pas une chronologie de l’exposition.
- Les statuts de W et E sont explicitement différents, mais aucune série temporelle ne documente une invasion ou son effet écologique.
Analyse guidée
Au passage du 18 juillet 2026, R et S diffèrent par la fréquence de présence de V : 9 quadrats fixes sur 12 contre 4 sur 12. Cette comparaison descriptive est lisible parce que la surface des quadrats et le protocole sont annoncés. Elle ne suffit toutefois pas à choisir une cause unique, ni à décrire une baisse dans le temps puisque les trois autres passages n’ont pas de valeurs fournies. L’humidité moyenne du sol est de 22 % dans R et 12 % dans S ; la conductivité d’un extrait d’eau du sol diffère aussi, de 340 à 820 µS/cm, sans substance polluante identifiée. Ces variables peuvent contribuer à des conditions abiotiques distinctes, tandis que les interactions avec W ou E demanderaient leurs propres données. W est qualifiée d’adventice locale ; E est exotique, mais le dossier ne montre ni expansion ni conséquence. La conclusion recevable est donc une association sous pressions possiblement combinées, avec une cause principale non attribuée.
Diagnostic d’erreur
Indice observéConclure que la plante exotique E est la cause de la rareté de V dans S et l’appeler automatiquement invasive.
CauseL’origine d’une plante est confondue avec une invasion démontrée, tandis que humidité, conductivité, chronologie et interactions restent confondues dans la comparaison.
Correction expliquée
Conserve les faits : E est seulement signalée comme exotique, V est présente dans 4 quadrats sur 12 à S le 18 juillet, et plusieurs conditions diffèrent. Demande une série de fréquences de présence, des mesures d’interactions et une caractérisation de l’exposition avant d’attribuer une cause.
Étape du cours · 6 à 11 min
Évaluer le potentiel évolutif sous des pressions humaines
Les pressions humaines n’agissent pas toutes au même niveau. Une perte d’habitat peut réduire l’effectif d’une population ; une pollution ou un changement hydrique peut modifier survie et reproduction ; la fragmentation peut changer les occasions de rencontre. Ces observations écologiques n’indiquent pas directement quels allèles sont présents. Pour raisonner, il faut séparer l’état démographique, les caractères observés et la diversité génétique mesurée.
Lorsque peu d’individus contribuent à la génération suivante, un goulot d’étranglement peut réduire par hasard la diversité génétique disponible. Ce résultat est possible, non automatique : l’effectif observé, l’effectif reproducteur et le nombre d’allèles ne sont pas le même indicateur. Un faible nombre d’individus vus dans un relevé peut venir d’une détection incomplète, alors qu’une diversité génétique faible demande des données adaptées. Il faut donc annoncer ce qui est mesuré avant de conclure.
Une pression peut aussi modifier les contributions relatives à la reproduction. Si un caractère est héréditaire et si les porteurs ne laissent pas la même descendance dans des conditions définies, les fréquences de variants peuvent changer par sélection. La dérive les modifie par échantillonnage aléatoire, tandis qu’un déplacement suivi de reproduction peut transmettre des allèles entre populations. Une fragmentation peut réduire ces échanges sans les annuler. La séparation spatiale ne prouve donc pas une spéciation : celle-ci suppose une divergence accompagnée d’une limitation durable des échanges reproducteurs. Pour relier une pression à ces mécanismes, on examine variation transmissible, reproduction et générations comparées.
Le potentiel évolutif désigne ici la possibilité, pour une population, de produire des changements héréditaires au fil des générations. Il dépend notamment de la diversité disponible, des mutations, des croisements, des effectifs et des contraintes du milieu. Un simple nombre de variants détectés à des marqueurs ne mesure pas directement la diversité des traits potentiellement adaptatifs. Une diversité réduite peut limiter certaines réponses, mais elle ne permet pas de prédire à elle seule une extinction ou une incapacité absolue à évoluer. Inversement, une diversité élevée ne garantit pas une réponse favorable ni assez rapide.
Des pressions simultanées peuvent accroître l’incertitude. Une sécheresse, une réduction de surface et un contaminant peuvent affecter des moments différents du cycle de vie ; une baisse de survie peut précéder une baisse de reproduction, puis une modification des fréquences. Pour relier ces niveaux, on cherche une chronologie, des unités cohérentes et des hypothèses concurrentes. Attribuer immédiatement tout changement à une seule pression ferait disparaître les interactions possibles et les variables non mesurées.
Une conclusion prudente formule donc une relation conditionnelle : telle pression est compatible avec telle contrainte démographique ou génétique dans le dossier considéré. Elle précise la preuve écologique disponible, la preuve génétique disponible et ce qui manque pour les relier. Cette lecture permet d’évaluer les conséquences possibles des pressions sur la diversité et le potentiel évolutif, avec les conditions de preuve propres à chaque niveau.
Voir pour comprendre
Distinguer les indices démographiques, écologiques et génétiques
Une même pression peut laisser plusieurs traces ; chaque trace répond à une question différente.
| Indice observé | Niveau décrit | Interprétation prudente | Preuve encore nécessaire |
|---|---|---|---|
| Abondance ou nids occupés | Démographie observée | Variation possible de l’effectif local | Reproduction effective et détection |
| Nombre de variants détectés à des marqueurs | Diversité génétique échantillonnée | Diversité détectée pour ces marqueurs | Traits potentiellement adaptatifs, échantillonnage comparable et suivi |
| Différence de survie | Réponse écologique | Filtre possible sur des organismes | Héritabilité et descendance relative |
| Fréquences sur générations | Changement évolutif potentiel | Mécanisme à discuter | Hypothèses concurrentes et reproduction |
Lis le schéma. Pars de l’indicateur mesuré, puis cherche la conclusion qu’il permet et l’information qui manque encore.
Une baisse d’abondance et une baisse de diversité peuvent être liées, mais elles ne suffisent pas à prouver une adaptation ou un mécanisme unique.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionDans un dossier synthétique, quelles conséquences des pressions humaines peut-on relier à la diversité génétique et au potentiel évolutif sans annoncer une adaptation garantie ?
Observations
- Le document écologique A rapporte que le nombre de nids occupés d’une population fictive R passe de 24 à 9 entre deux périodes, après une réduction de surface et trois épisodes de faible humidité.
- Le document B indique que seuls 11 adultes ont produit au moins un jeune observé lors de la seconde période ; il ne donne pas l’effectif reproducteur des années antérieures.
- Le document génétique C signale 14 variants détectés dans l’échantillon antérieur et 9 dans l’échantillon récent, avec une méthode et des tailles d’échantillon identiques annoncées.
- Le document D ne mesure ni la survie des variants, ni la descendance de génotypes précis, ni la part respective de chaque pression.
- Toutes les valeurs concernent une population fictive R et ne décrivent pas une station réelle.
Hypothèses
- Un goulot lié à une réduction antérieure du nombre de reproducteurs a pu contribuer à la réduction de diversité détectée.
- La baisse de variants détectés reflète seulement une variation d’échantillonnage ou une autre cause non mesurée.
- Une pression a déjà sélectionné un variant assurant l’adaptation de la population.
Preuves à fournir
- La baisse du nombre de nids occupés et la diversité détectée plus faible dans l’échantillon récent rendent la première hypothèse plausible, sans l’établir seule.
- La méthode et les tailles d’échantillon identiques limitent, sans éliminer totalement, une explication purement technique.
- Des suivis de plusieurs générations, de la reproduction des génotypes et de traits potentiellement adaptatifs seraient nécessaires pour discuter une sélection ou le potentiel évolutif.
- La séparation ou la combinaison des pressions demanderait des comparaisons supplémentaires, car le dossier ne les isole pas.
Analyse guidée
Le dossier autorise deux constats : les nids occupés passent de 24 à 9 et 11 adultes ont produit au moins un jeune pendant la seconde période, sans comparaison antérieure du nombre de reproducteurs ; le nombre de variants détectés passe de 14 à 9 avec une méthode annoncée identique. Cette concordance est compatible avec une contrainte démographique et un goulot possible, donc avec une diversité détectée plus faible pour ces marqueurs. Elle ne démontre ni la cause unique de la baisse, ni une sélection, ni la diversité de traits adaptatifs. L’hypothèse d’adaptation garantie doit être écartée : aucune différence de descendance entre génotypes ni évolution de fréquence n’est fournie.
Diagnostic d’erreur
Indice observéÉcrire que neuf variants détectés prouvent que la population ne pourra plus évoluer.
CauseUn indicateur de diversité est transformé en prédiction certaine, sans considérer l’échantillonnage, la reproduction, les autres sources de variation ni les conditions futures.
Correction expliquée
Indiquer que la diversité détectée est plus faible dans le dossier, que cela peut contraindre le potentiel évolutif, puis nommer les preuves supplémentaires nécessaires avant toute prédiction.
Étape du cours · 5 à 10 min
Assembler des preuves écologiques et évolutives
Une explication multi-pressions commence par décrire les documents sans les confondre. Une réduction de surface, une sécheresse et une nouvelle interaction biologique peuvent agir sur des étapes différentes : accès à l’habitat, survie, reproduction ou dispersion. Le raisonnement construit ensuite une chaîne conditionnelle entre pression, filtre et réponse observée. Il n’ajoute pas une cause lorsque le document ne mesure qu’une association.
Une preuve écologique renseigne sur des organismes et leurs conditions : abondance, composition, survie, date de reproduction ou fonctionnement d’une interaction. Elle peut montrer qu’un état change, mais elle ne donne pas directement la fréquence d’un allèle. Par exemple, une baisse de pollinisateurs observée avec une sécheresse peut soutenir une modification d’interaction ; elle ne permet pas de désigner un variant impliqué chez la plante ou l’insecte.
Une preuve génétique porte sur des variants, des génotypes ou leur transmission. Une différence de fréquences entre générations peut être compatible avec une évolution si les unités, la comparabilité des échantillons et la reproduction sont établies. Elle ne mesure pas à elle seule le filtre écologique qui a agi. Pour relier les deux niveaux, il faut des observations qui documentent à la fois le contexte, le caractère héréditaire et les contributions à la génération suivante.
Comparer plusieurs documents oblige à conserver les alternatives. Une baisse d’abondance peut venir de conditions abiotiques, d’une interaction, d’une détection différente ou de plusieurs facteurs. Une baisse de diversité détectée peut accompagner un faible effectif, sans prouver la pression responsable. Une réponse rigoureuse annonce donc ce qui est observé, l’hypothèse mécanistique compatible, la limite et la prochaine donnée qui pourrait départager les explications.
Un transfert de parenté reste lui aussi borné. Dans une petite matrice hypothétique, R est posé comme groupe externe, l’état M = 0 comme ancestral et l’état M = 1 comme dérivé. Si P et Q partagent M = 1, avec une acquisition unique sans perte ni convergence, P et Q peuvent être regroupés dans l’hypothèse annoncée. Une tolérance commune à la sécheresse, sans caractères comparables ni modèle, ne suffit pas à établir cette parenté : elle peut être plastique, ancestrale ou apparue indépendamment.
La synthèse finale relie donc des niveaux différents sans les écraser : les activités humaines peuvent modifier des conditions et la démographie ; des conséquences évolutives deviennent discutables lorsque variation héréditaire et reproduction sont documentées ; les documents rendent visibles les étapes qui relient ces niveaux. Une conclusion solide nomme les observations, l’hypothèse compatible et la preuve qui compléterait le raisonnement.
Voir pour comprendre
Lire des documents multi-pressions sans fusionner les preuves
Un même dossier peut contenir des indices écologiques, démographiques, génétiques et de parenté aux portées différentes.
| Document | Mesure | Conclusion autorisée | Ce que la mesure ne démontre pas |
|---|---|---|---|
| Paysage ou climat | Pression et période | Contexte potentiellement modifié | Cause unique d’une réponse biologique |
| Abondance ou visites | Réponse écologique | Variation d’état ou d’interaction | Allèle responsable |
| Variants entre générations | Données génétiques | Changement à expliquer | Mécanisme de sélection démontré |
| Matrice de caractères | Hypothèse de parenté | Regroupement sous un modèle annoncé | Progrès, durée ou adaptation |
Lis le schéma. Pour chaque document, identifie d’abord ce qui est mesuré, puis l’hypothèse qu’il soutient et la preuve nécessaire pour aller plus loin.
La cohérence de plusieurs documents rend une explication plus testable ; elle ne comble pas les maillons non mesurés.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionComment rédiger une conclusion qui articule deux pressions, une réponse écologique et une hypothèse évolutive sans confondre leurs preuves ?
Observations
- Le document A, fictif, indique qu’une population d’orchidée K occupe 18 placettes avant une période sèche puis 11 placettes après, dans un paysage dont deux fragments ont disparu.
- Le document B, fictif, compte 46 visites de pollinisateurs pendant une fenêtre d’observation avant la période sèche puis 21 après ; la durée d’observation est la même, mais les espèces de pollinisateurs ne sont pas identifiées.
- Le document C, fictif, relève chez K une fréquence du variant génétique G de 0,38 puis 0,51 dans deux échantillons de générations successives ; il ne fournit ni effectif reproducteur ni fonction du variant.
- Le document D, fictif, pose R comme groupe externe et M = 0 comme état ancestral ; il donne P = 1 et Q = 1, avec l’hypothèse d’une acquisition unique de M, sans perte ni convergence.
- Aucun document ne mesure directement l’effet de la baisse de visites sur la descendance des porteurs du variant G.
Hypothèses
- La période sèche et la disparition de fragments ont contribué à la baisse d’occupation et de visites observée.
- Le changement de fréquence de G résulte d’une différence de reproduction liée à ces pressions.
- La fréquence de G a changé pour une autre raison, telle qu’un échantillonnage, une dérive ou un flux non documenté.
Preuves à fournir
- Les documents A et B apportent des indices écologiques et démographiques, pas une mesure de transmission du variant G.
- Le document C rend visible un changement de fréquence compatible avec une évolution, mais ne départage pas les mécanismes.
- Le suivi de descendants de génotypes connus, dans des conditions décrites, aiderait à tester le lien entre pression et reproduction relative.
- Le document D soutient seulement le regroupement hypothétique de P et Q par l’état dérivé M = 1, polarisé grâce au groupe externe R ; il ne renseigne ni sur la sécheresse ni sur une durée évolutive.
Analyse guidée
La diminution de 18 à 11 placettes et de 46 à 21 visites décrit une réponse écologique dans le dossier fictif ; elle est compatible avec l’action combinée des pressions, mais ne les isole pas. Le passage de G de 0,38 à 0,51 est une preuve génétique distincte : il justifie l’hypothèse d’un changement entre générations, non celle de sa cause. Il faut donc conserver l’alternative de dérive, de flux ou d’échantillonnage. Dans la matrice, R polarise M = 0 comme ancestral ; sous le gain unique annoncé, P et Q partagent l’état dérivé M = 1. Cette lecture ne transforme pas leur tolérance supposée en preuve de parenté.
Diagnostic d’erreur
Indice observéÉcrire que la baisse de visites prouve que G rend l’orchidée adaptée à la sécheresse.
CauseUne donnée écologique, une fréquence génétique et un mécanisme de sélection sont fusionnés alors qu’aucun document ne relie la reproduction des génotypes aux pressions.
Correction expliquée
Rédiger trois niveaux séparés : réponse écologique observée, changement de fréquence observé, puis hypothèse à tester avec une donnée de descendance ou de survie par génotype.
Poursuivre avec l’abonnement
Relier pressions humaines et réponses de la biodiversité
Étudie les paysages comparés, les cas corrigés et les grilles de raisonnement.
Analyse les six répétitions, entraîne-toi aux dossiers de transfert et vérifie tes réponses avec les questions corrigées et les cartes.
21 questions · 21 cartes. La reprise de ce cours est enregistrée localement dans ton navigateur.
Voir les offres Déjà abonné ? Se connecterVérifier et prolonger
Sources du cours
Édition Maxdecours · Vérifié le .
Spécialité biologie-écologie, Terminale : fragmentation, perturbations et évolution de la biodiversité.
- Programme de l’enseignement de spécialité de biologie-écologie de la classe terminaleChloroFil, Ministère de l’Agriculture et de la Souveraineté alimentaire · consulté le 2026-09-11
- Arrêté du 23 juillet 2019 fixant le programme de biologie-écologieLégifrance · consulté le 2026-09-08
- Cadrage de l'épreuve terminale de biologie-écologie à compter de la session 2024Bulletin officiel du ministère de l'Agriculture · consulté le 2026-09-08
- Arrêté du 19 juin 2026 sur le choix entre biologie-écologie et sciences de la vie et de la TerreLégifrance · consulté le 2026-09-08
- Évaluation des compétences expérimentales en biologie-écologieChloroFil, ministère de l'Agriculture · consulté le 2026-09-08
- Sujet zéro et grilles de l'épreuve écrite de biologie-écologieInspection de l'enseignement agricole, Chlorofil · consulté le 2026-08-21
- Habitat fragmentation and its lasting impact on Earth’s ecosystemsScience Advances · consulté le 2026-09-11
- Rapid evolution of flowering time by an annual plant in response to a climate fluctuationProceedings of the National Academy of Sciences · consulté le 2026-09-11
© 2026 Maxdecours.com · Comprendre et progresser