
Biologie-écologie · Première
Comment prévoir la transmission des allèles ?
Un arbre permet de tester un mode de transmission sous des hypothèses explicites. La méiose sépare les homologues puis les chromatides et redistribue les allèles. Un croisement-test révèle les catégories de gamètes ; la fécondation permet ensuite de calculer les probabilités des génotypes.
Explications et exemples en accès libre. Ateliers, quiz et cartes avec l’abonnement.
Prévoir mon tempsExplications et exemples en accès libre
Une première étude des explications, schémas, exemples résolus et erreurs expliquées. Les activités, productions, quiz et cartes réservés à l’abonnement ne sont pas comptés ici.
- Comprendre1776 mots d’explication et 4 schémas et 2 documents
- 14 à 24 min
- Étudier les exemples et les erreurs4 cas, exemples et activités guidés
- 12 à 20 min
Étude du cours en accès libre, environ25 min à 45 min
Voir le calcul et le temps par étape
Le calcul suit automatiquement les explications et les tâches présentes dans le cours. Ses coefficients sont des repères de planification, pas des temps mesurés auprès d’élèves.
- Lecture active : 1776 mots, à raison de 160 à 220 mots par minute.
- Schémas : 4, avec 1 à 2 min pour lire chacun.
- Cas scientifique : 4 × 3 à 5 min.
- 5 outils de référence (1 à 2 min chacun).
- Tester un mode de transmission avec un arbre fictif6 à 12 min
- Compter chromosomes et chromatides au cours de la méiose6 à 12 min
- Distinguer assortiment et recombinaison6 à 11 min
- Calculer des probabilités de génotypes5 à 10 min
Les sous-totaux sont arrondis à la minute, puis additionnés. La fourchette totale est élargie aux cinq minutes voisines. Les étapes ci-dessus comprennent leurs explications et exemples ; elles ne s’ajoutent pas une seconde fois au total.
Adapte ce repère à tes acquis et au soin apporté aux exercices. Les pauses, les reprises, la consultation des sources externes et les révisions suivantes s’ajoutent selon tes besoins.
Avec les ateliers, les analyses documentaires, le quiz et les cartes : environ 1 h 15 à 2 h 10, à répartir sur plusieurs séances.
Objectifs du cours
Ce que tu vas savoir faire
- Déduire des génotypes compatibles à partir d’un arbre fictif et d’un modèle récessif.
- Distinguer chromosomes homologues et chromatides pendant les deux divisions de méiose.
- Identifier parentaux et recombinés dans un croisement-test et calculer leur fréquence.
- Calculer une probabilité simple ou conditionnelle avec un échiquier et borner la conclusion.
Repère visuel Biologie-écologie
De l’arbre aux probabilités
Quatre étapes relient des observations fournies aux mécanismes et aux résultats attendus.
- 1Tester une transmissionRelève les phénotypes et déduis les génotypes compatibles sous les hypothèses du modèle.
- 2Suivre la méioseSépare homologues puis chromatides, sans ajouter une réplication entre les deux divisions.
- 3Lire les recombinésPars de la phase des allèles, classe les descendants et calcule une fréquence.
- 4Calculer les probabilitésConstruis l’échiquier puis précise l’ensemble de cas retenus par la condition demandée.
Le modèle relie les hypothèses aux résultats attendus. Une probabilité intermédiaire ne prédit pas l’issue d’une fécondation particulière.
Étape du cours · 6 à 12 min
Tester un mode de transmission avec un arbre fictif
Un arbre généalogique représente des liens de parenté et des phénotypes déclarés dans un modèle. Il ne donne pas directement tous les génotypes. Pour le lire, commence par relever qui est relié à qui, les générations et les phénotypes présents ou absents ; seulement ensuite, teste les hypothèses de transmission. Un arbre fournit donc des compatibilités et des exclusions, pas une étiquette médicale pour une personne réelle.
Un gène est une portion d’ADN dont les différentes versions sont des allèles. Le génotype indique ici les allèles étudiés, et le phénotype le caractère observé. Dans le modèle autosomique récessif A/a, le gène est porté par un chromosome autre que X ou Y ; le phénotype étudié est présent seulement chez aa. La pénétrance supposée complète signifie que tous les individus aa du modèle l’expriment. AA et Aa ne l’expriment pas. Si deux parents sans ce phénotype ont un enfant aa, chacun a transmis a : ils sont donc Aa. Les autres enfants sans ce phénotype peuvent être AA ou Aa.
Le dossier fictif comporte I-1, homme au phénotype absent, et I-2, femme au phénotype absent. Leurs enfants sont II-1, fille au phénotype présent, II-2, garçon au phénotype absent, et II-3, fille au phénotype absent. Sous les hypothèses annoncées, II-1 est aa et les deux parents sont Aa. Un modèle autosomique dominant est exclu ici : avec pénétrance complète et sans nouvelle variation, deux parents au phénotype absent ne peuvent produire un enfant au phénotype présent.
Le même dossier exclut aussi le modèle récessif lié au chromosome X dans les hypothèses simplifiées : une fille au phénotype présent devrait avoir reçu l’allèle récessif de son père, alors que I-1 a le phénotype absent. Cette exclusion ne vaut que pour le modèle donné. Elle ne dispense pas d’examiner d’autres informations dans une situation réelle, où peuvent intervenir pénétrance incomplète, nouvelles variations, erreurs de phénotype ou filiation inconnue.
La mucoviscidose est une maladie monogénique de transmission autosomique récessive associée à des variants de CFTR. Ce gène permet la production d’un canal membranaire qui transporte des ions chlorure et contribue aux mouvements d’eau. Son fonctionnement perturbé peut rendre les sécrétions anormalement épaisses. De nombreux variants de CFTR existent : les deux copies associées à la maladie ne portent pas nécessairement le même variant. La lettre a simplifie cette diversité pour les calculs, et la gravité dépend aussi d’autres facteurs génétiques et environnementaux. Le dossier familial du cours est inventé, pas extrait d’une étude sur la mucoviscidose.
Voir pour comprendre
Lire l’arbre fictif avec le modèle A/a
La grille sépare les observations de l’arbre et les génotypes que le modèle autosomique récessif autorise.
| Personne fictive | Phénotype et génotype compatible |
|---|---|
| I-1, père | Absent ; Aa dans le modèle |
| I-2, mère | Absent ; Aa dans le modèle |
| II-1, fille | Présent ; aa |
| II-2, garçon | Absent ; AA ou Aa |
| II-3, fille | Absent ; AA ou Aa |
Lis le schéma. Lis d’abord le phénotype de chaque personne fictive, puis applique la règle aa avant d’écarter les génotypes incompatibles.
Dans ce modèle, II-1 aa impose deux parents Aa ; les enfants au phénotype absent ne sont pas départagés entre AA et Aa par l’arbre seul.
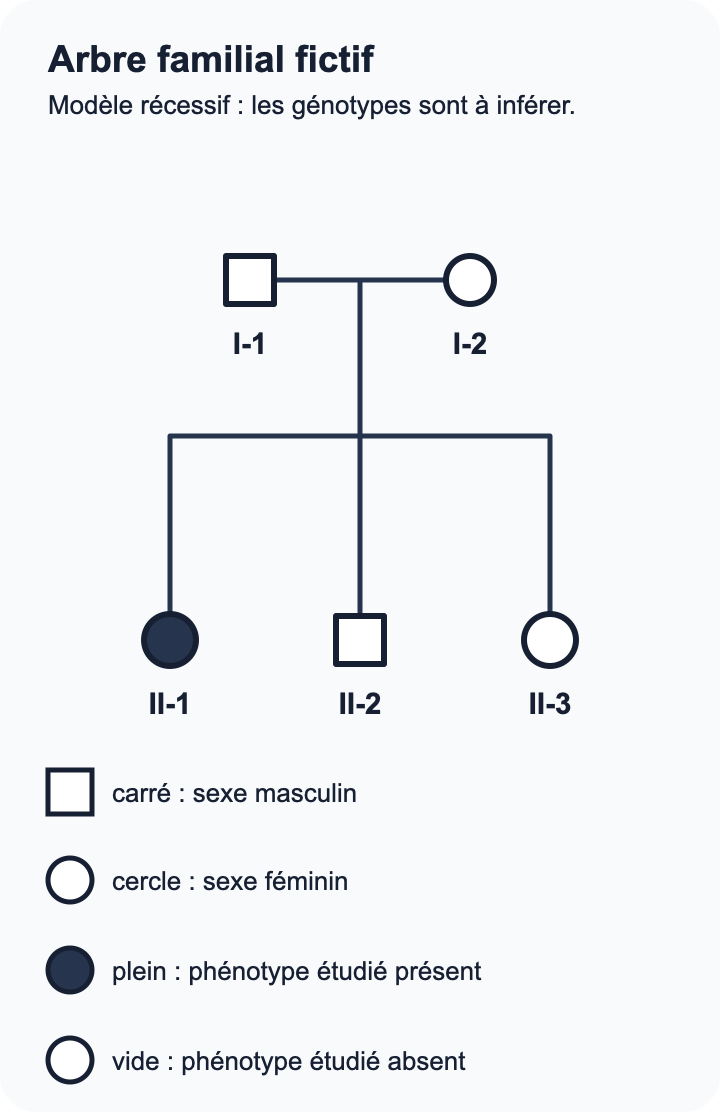
Arbre entièrement fictif. Les formes, leur remplissage et les codes sont explicités dans la légende ; aucun génotype n’est donné par le dessin.
Les parents I-1 et I-2 sont reliés aux trois enfants II-1, II-2 et II-3. Seule II-1 présente le phénotype étudié. Le carré et le cercle indiquent les sexes du modèle ; le remplissage indique le phénotype, pas un génotype connu. Pour déduire Aa ou aa, applique les hypothèses de transmission précisées dans le cas scientifique. Aucun dossier personnel n’est représenté.
Maxdecours, dessin pédagogique original · Illustration originale Maxdecours · vérifié le 08/09/2026
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionQue permet de conclure l’arbre fictif I-1/I-2/II-1 à II-3 dans le modèle autosomique récessif A/a ?
Observations
- Dossier fictif : I-1, homme, a le phénotype absent ; I-2, femme, a le phénotype absent.
- II-1, leur fille, a le phénotype présent ; II-2, leur fils, et II-3, leur fille, ont le phénotype absent.
- Le modèle impose un seul gène à deux allèles A/a, une pénétrance complète, aucune nouvelle variation et une filiation définie.
- Dans l’hypothèse autosomique récessive, le phénotype présent correspond au génotype aa.
Hypothèses
- La transmission est autosomique récessive : I-1 et I-2 sont Aa, II-1 est aa, et II-2 comme II-3 sont AA ou Aa.
- La transmission est autosomique dominante avec deux parents au phénotype absent.
- La transmission est récessive liée au chromosome X avec un père au phénotype absent et une fille au phénotype présent.
Preuves à fournir
- Pour former aa, II-1 reçoit un allèle a de chacun de ses parents.
- I-1 et I-2 ont le phénotype absent : dans le modèle récessif, ils ne peuvent pas être aa et sont donc Aa.
- Dans le modèle dominant à pénétrance complète et sans nouvelle variation, deux parents au phénotype absent ne transmettent pas un allèle dominant responsable à II-1.
- Dans le modèle récessif lié au X, une fille au phénotype présent devrait recevoir l’allèle récessif de son père, ce qui est incompatible avec le phénotype absent de I-1 dans ce modèle.
Analyse guidée
Le phénotype présent de II-1 vaut aa dans l’hypothèse autosomique récessive. Chacun des parents lui a donc transmis a. Comme I-1 et I-2 ont le phénotype absent, ils ne sont pas aa ; chacun est Aa. II-2 et II-3 ont le phénotype absent, ce qui est compatible avec AA ou Aa, sans permettre de choisir. Les deux autres modèles proposés sont exclus par des transmissions impossibles sous les hypothèses fermées du dossier. Le raisonnement concerne cet arbre fictif ; il ne fournit ni diagnostic ni pronostic familial.
Diagnostic d’erreur
Indice observéAttribuer AA aux deux enfants au phénotype absent, ou conclure qu’un arbre fictif diagnostique une famille réelle.
CauseLe phénotype absent est confondu avec un génotype unique et le modèle scolaire est pris pour une situation clinique complète.
Correction expliquée
Écris les génotypes compatibles : II-2 et II-3 peuvent être AA ou Aa. Conserve les hypothèses du dossier et borne la conclusion à cet arbre fictif.
Étape du cours · 6 à 12 min
Compter chromosomes et chromatides au cours de la méiose
Dans le modèle animal choisi, la méiose produit des cellules haploïdes à l’origine des gamètes à partir d’une cellule diploïde. 2n = 4 signifie deux paires de chromosomes homologues : une paire porte A/a et une autre porte B/b. Un chromosome et une chromatide ne sont pas synonymes. Après réplication, un chromosome est formé de deux chromatides sœurs réunies au niveau du centromère : le nombre de chromosomes est conservé, tandis que le nombre de chromatides double.
Dans l’état de départ répliqué du modèle, la cellule compte quatre chromosomes et huit chromatides. Après la première division de méiose, les homologues d’une paire se trouvent dans des cellules différentes : chaque cellule possède n = 2 chromosomes, encore doublés, soit quatre chromatides. Il n’y a pas de réplication entre les deux divisions. Après la seconde division, les chromatides sœurs sont séparées : chaque gamète contient n = 2 chromosomes et deux chromatides.
Pour éviter les confusions, compte les chromosomes par leurs centromères dans les états terminés du dossier. Les homologues portent les mêmes loci mais peuvent porter des allèles différents, comme A et a ; les chromatides sœurs sont les deux copies d’un même chromosome après réplication. Compter pendant une anaphase peut brouiller la convention car les centromères se séparent en cours de déplacement. Le modèle donne donc des états stabilisés avant ou après une division.
Dans une méiose sans crossing-over représenté, une orientation possible des deux paires en première division produit deux cellules portant AB et ab. La seconde division répartit les chromatides déjà présentes dans quatre cellules haploïdes : deux AB et deux ab. Une autre orientation peut produire Ab et aB. Une seule méiose n’impose donc pas quatre types de gamètes différents ; elle en produit ici deux types répétés.
Sur de nombreuses méioses, les orientations des paires sont équiprobables dans ce modèle simple : AB, ab, Ab et aB deviennent quatre types attendus à même fréquence. Cette proportion résume un grand nombre de méioses comparables, pas l’ordre des gamètes d’une cellule unique. Le crossing-over n’est pas représenté ici : il sera distingué du brassage interchromosomique par un dossier propre, au lieu d’être ajouté sans donnée au schéma de ségrégation.
Voir pour comprendre
Compter 2n = 4 au fil de la méiose
Le tableau distingue les chromosomes comptés par centromères et les chromatides dans des états terminés du modèle.
| État du modèle | Par cellule : chromosomes et chromatides |
|---|---|
| Après réplication | 2n = 4 ; 4 chromosomes ; 8 chromatides |
| Après méiose I | n = 2 ; 2 chromosomes ; 4 chromatides |
| Après méiose II | n = 2 ; 2 chromosomes ; 2 chromatides |
| Orientation AB/ab | Deux gamètes AB et deux gamètes ab, sans crossing-over |
| Nombreuses méioses | AB, ab, Ab et aB attendus à même fréquence dans ce modèle |
Lis le schéma. Lis chaque étape par cellule, puis vérifie séparément n, le nombre de chromosomes et celui des chromatides.
La première division réduit 2n à n ; la seconde sépare les chromatides sœurs sans changer n.
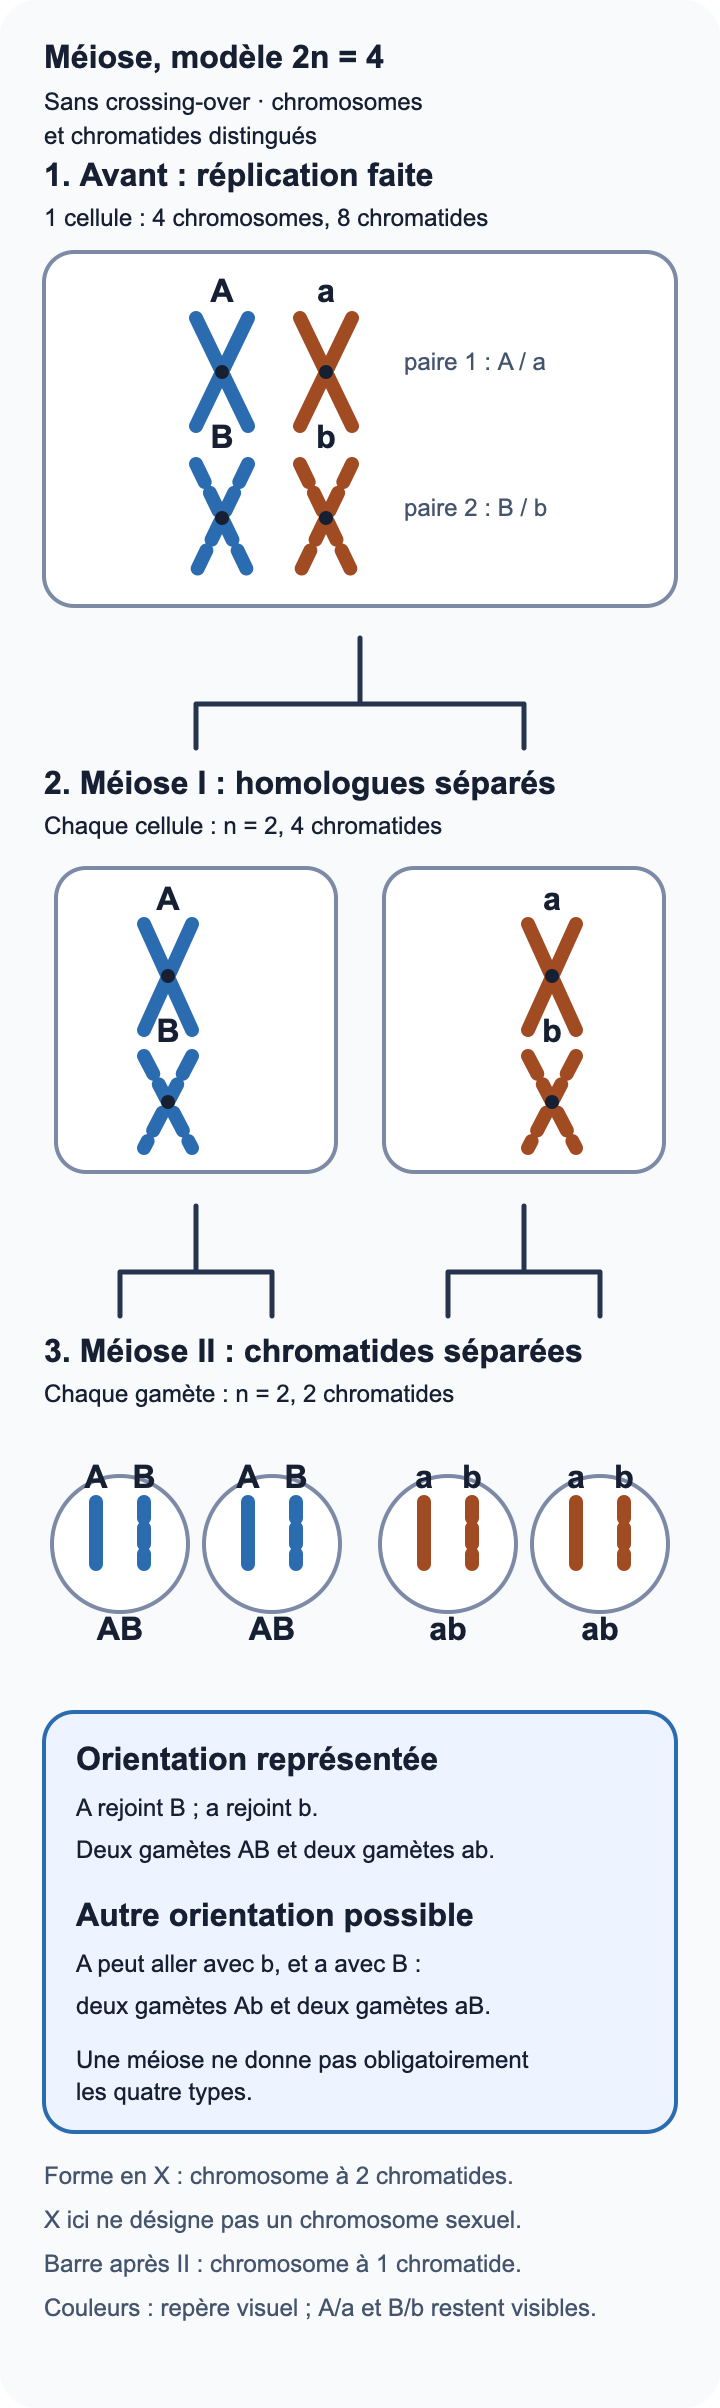
Modèle chromosomique original 2n = 4, avec deux loci sur deux paires distinctes. Les lettres permettent de suivre les homologues sans dépendre uniquement des couleurs. Aucun crossing-over n’est représenté.
Au départ répliqué, on compte quatre chromosomes à deux chromatides. Après la première division, chaque cellule conserve deux chromosomes doubles. Après la seconde, les quatre cellules haploïdes possèdent chacune deux chromosomes simples. La branche dessinée donne AB et ab deux fois chacun ; une autre orientation lors d’autres méioses peut donner Ab et aB. Il n’y a pas de réplication entre les deux divisions.
Maxdecours, dessin pédagogique original · Illustration originale Maxdecours · vérifié le 08/09/2026
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionComment suivre 2n = 4 dans une méiose sans crossing-over représenté sans confondre chromosomes et chromatides ?
Observations
- Modèle animal : deux paires homologues, A/a et B/b, donnent 2n = 4 avant la réplication.
- Après réplication, le modèle indique quatre chromosomes et huit chromatides.
- Après méiose I, chacune des deux cellules indique n = 2 chromosomes et quatre chromatides.
- Après méiose II, chacun des quatre gamètes indique n = 2 chromosomes et deux chromatides ; aucune réplication entre I et II n’est indiquée.
Hypothèses
- Les homologues se séparent pendant la méiose I, puis les chromatides sœurs pendant la méiose II.
- Les chromatides sœurs se séparent dès la méiose I, puis les chromosomes homologues se séparent pendant la méiose II.
- Une nouvelle réplication entre les deux divisions explique les quatre gamètes.
Preuves à fournir
- Le nombre de chromosomes par cellule passe de 4 à 2 après la première division, tandis que les chromosomes restent à deux chromatides.
- Le nombre de chromatides par cellule passe de 4 à 2 après la seconde division sans changement de n, ce qui correspond à la séparation des chromatides sœurs.
- Le modèle ne montre aucun retour de 4 à 8 chromatides entre les divisions.
- La présence de quatre gamètes vient de deux divisions successives, non d’une réplication intermédiaire.
Analyse guidée
Après réplication, quatre chromosomes sont visibles par quatre centromères et huit chromatides sont associées par paires. Après I, chaque cellule possède un homologue de chaque paire : n = 2, mais chaque chromosome garde deux chromatides, donc quatre chromatides. Après II, les chromatides sœurs se séparent ; chaque gamète garde n = 2 chromosomes à une chromatide, soit deux chromatides. Cette succession soutient la séparation des homologues puis des chromatides sœurs. Elle ne permet pas de conclure qu’un crossing-over a eu lieu, car le modèle n’en représente aucun.
Diagnostic d’erreur
Indice observéÉcrire que chaque cellule possède quatre chromosomes après méiose I, ou ajouter une réplication entre les deux divisions.
CauseLe doublement des chromatides après réplication est confondu avec un doublement du nombre de chromosomes, et les deux divisions sont assimilées.
Correction expliquée
Compte les chromosomes par les centromères dans les états terminés : 4 puis 2 puis 2 par cellule ; compte séparément les chromatides : 8 puis 4 puis 2.
Étape du cours · 6 à 11 min
Distinguer assortiment et recombinaison
Un locus est la position d’un gène sur un chromosome. On étudie deux gènes autosomiques, l’un à allèles A/a, l’autre B/b, avec dominance complète et sans interaction qui masque les phénotypes. Pour des loci sur le même chromosome, la notation AB/ab indique A et B sur un homologue, a et b sur l’autre. Le croisement-test AB/ab × ab/ab utilise un second parent qui ne produit que des gamètes ab. Les descendants AaBb, aabb, Aabb et aaBb révèlent respectivement les gamètes AB, ab, Ab et aB du parent hétérozygote ; AB et ab sont ici parentaux, Ab et aB recombinés.
L’orientation aléatoire des paires de chromosomes homologues en méiose I produit le brassage interchromosomique. Elle répartit les homologues sans être elle-même un échange de segments. Pour deux loci sur des chromosomes différents, on note le parent (A/a ; B/b), le point-virgule séparant les paires. Son croisement-test avec (a/a ; b/b) donne les mêmes quatre catégories de descendants, mais on attend chacune à un quart sur de nombreuses méioses. AB et ab désignent ici les associations des lignées initiales AABB et aabb, Ab et aB les nouvelles associations.
Le brassage intrachromosomique a une autre origine. En prophase I, un crossing-over peut échanger des segments entre chromatides non sœurs de deux chromosomes homologues. Si l'échange a lieu entre les deux loci, il produit les associations Ab et aB à partir de AB et ab. Il ne crée pas de nouveaux allèles : il associe autrement des allèles déjà présents.
Dans le dossier synthétique lié, on compte 420 AaBb, 380 aabb, 110 Aabb et 90 aaBb, soit 1 000 descendants avec classification fiable et viabilité identique supposées. Les recombinés sont 110 + 90 = 200, donc 20 %. Les parentaux majoritaires soutiennent une liaison dans ce croisement-test. Le dossier indépendant, avec deux paires distinctes, donne 245, 255, 250 et 250 descendants dans le même ordre : 500 recombinés sur 1 000, soit 50 %.
Une fréquence proche de 50 % décrit ici un assortiment compatible avec l'indépendance, mais elle ne démontre pas à elle seule que les deux loci sont sur des chromosomes différents. Des loci très éloignés sur le même chromosome peuvent aussi donner beaucoup de recombinés. Le pourcentage de recombinés est une fréquence observée dans un croisement et non une distance physique entre deux loci.
Morgan, Sturtevant, Muller et Bridges publient en 1915 un tableau portant sur la couleur et la forme des yeux de drosophiles, caractères liés au chromosome X. La page 59 donne : yeux blancs et ronds 28 %, rouges et en barre 28 % pour les parentaux ; blancs et en barre 22 %, rouges et ronds 22 % pour les recombinés, soit 44 %. Leur commentaire souligne qu’une liaison de ce type peut être difficile à repérer sans effectifs suffisants. Aucun effectif absolu n’est donné dans ce tableau. Il montre qu’une liaison n’empêche pas une recombinaison abondante ; les deux dossiers de calcul du cours restent des modèles synthétiques distincts.
Voir pour comprendre
Deux brassages, deux lectures des descendants
Le modèle sépare l’orientation des paires et l’échange entre chromatides non sœurs de chromosomes homologues.
| Mécanisme | Conséquence dans le modèle |
|---|---|
| Orientation aléatoire des paires en méiose I | Brassage interchromosomique ; quatre classes proches d'un quart si assortiment indépendant |
| Crossing-over entre chromatides non sœurs en prophase I | Brassage intrachromosomique ; associations Ab et aB possibles |
| Dossier lié : 200 recombinés sur 1 000 | 20 % ; classes parentales majoritaires |
| Dossier indépendant : 500 recombinés sur 1 000 | 50 % ; compatible avec assortiment indépendant |
Lis le schéma. Lis d'abord le mécanisme, puis la catégorie de gamètes ou de descendants qui en résulte.
Un recombinant associe autrement des allèles existants ; il ne crée pas de nouvel allèle.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionComment un croisement-test permet-il de comparer une liaison avec un assortiment indépendant ?
Observations
- Croisement-test modèle : AB/ab × ab/ab ; le second parent ne fournit que des gamètes ab.
- Dossier lié : AaBb 420, aabb 380, Aabb 110 et aaBb 90, avec N = 1 000.
- Dossier indépendant : (A/a ; B/b) × (a/a ; b/b), puis 245, 255, 250 et 250 descendants dans le même ordre de génotypes, avec N = 1 000.
- La classification est fiable et les quatre catégories ont la même viabilité dans les deux dossiers synthétiques.
Hypothèses
- Si les loci sont liés dans ce croisement-test, les catégories parentales seront plus nombreuses que les recombinées.
- Si les loci s'assortissent indépendamment, les quatre catégories seront proches d'un quart chacune dans ce modèle.
Preuves à fournir
- Dossier lié : (110 + 90) / 1 000 = 20 % de recombinés et 80 % de parentaux.
- Dossier indépendant : (250 + 250) / 1 000 = 50 % de recombinés.
- Les mêmes catégories, le même effectif total et les mêmes hypothèses de classement rendent les fréquences comparables.
- Le tableau de 1915 rapporte 44 % de recombinés pour des facteurs liés au chromosome X de drosophile.
Analyse guidée
Le parent ab/ab sert de révélateur : chaque classe de descendant indique le gamète du parent AB/ab. Dans le premier dossier, AB et ab totalisent 800 descendants, Ab et aB 200 : les types parentaux dominent et la fréquence recombinée est 20 %. Dans le second, les recombinés totalisent 500, soit 50 %. La première distribution est compatible avec des loci liés et des crossing-over occasionnels ; la seconde est compatible avec l'assortiment indépendant. Une valeur proche de 50 % ne tranche toutefois pas entre chromosomes différents et loci très éloignés sur un même chromosome.
Diagnostic d’erreur
Indice observéConclure que des loci liés ne donnent jamais de recombinés, ou que 50 % prouve des chromosomes différents.
CauseLes mécanismes interchromosomique et intrachromosomique sont confondus avec une conclusion plus large que le croisement-test.
Correction expliquée
Classe d'abord parentaux et recombinés, calcule leur fréquence, puis relie une fréquence inférieure à 50 % à la liaison dans le modèle. Ajoute qu'un résultat proche de 50 % peut aussi correspondre à des loci éloignés sur le même chromosome.
Étape du cours · 5 à 10 min
Calculer des probabilités de génotypes
Pour le croisement Aa × Aa, chaque parent produit des gamètes A et a avec une fréquence de 1/2 dans le modèle. L'échiquier associe une ligne de gamètes à une colonne de gamètes : AA, Aa, Aa et aa. Il donne ainsi 1/4 AA, 1/2 Aa et 1/4 aa parmi les descendants attendus.
Dans le modèle d'un caractère récessif à pénétrance complète, seul le génotype aa exprime le phénotype étudié. AA et Aa n'expriment pas ce phénotype. Cette correspondance est posée pour le calcul : elle suppose l'absence de nouvelle mutation et ne décrit pas une situation familiale réelle.
La probabilité peut devenir conditionnelle. Parmi les descendants sans phénotype, les génotypes possibles sont AA et Aa avec des proportions initiales 1/4 et 1/2. On conditionne alors sur les 3/4 sans phénotype : P(Aa | sans phénotype) = (1/2) / (3/4) = 2/3. Le résultat n'est pas 1/2, car l'information « sans phénotype » a écarté aa.
Avec des parents fixes Aa × Aa et les hypothèses du modèle conservées, deux fécondations sont deux événements indépendants. La probabilité d'obtenir deux descendants aa est 1/4 × 1/4 = 1/16. Celle de n'obtenir aucun descendant aa est 3/4 × 3/4 = 9/16 ; celle d'au moins un aa est donc 1 − 9/16 = 7/16.
Ces calculs portent sur des distributions attendues, non sur une compensation entre naissances. Une naissance antérieure ne modifie pas les fréquences de gamètes de la fécondation suivante dans le modèle. Les événements certains et impossibles ont respectivement les probabilités 1 et 0 ; les probabilités intermédiaires décrivent une chance définie par les hypothèses du croisement.
Un échiquier devient fiable quand ses hypothèses restent visibles : génotypes parentaux connus, gamètes équiprobables, pénétrance complète dans le modèle et absence de nouvelle mutation. Changer l'une de ces conditions change les probabilités calculées. La démarche attendue est donc de construire les gamètes, remplir les quatre cases, puis préciser la condition demandée avant de calculer.
Voir pour comprendre
Échiquier du croisement Aa × Aa
Les lignes et colonnes représentent des gamètes produits à 1/2 dans le modèle.
| Gamète du parent 1 | Gamète A du parent 2 (1/2) | Gamète a du parent 2 (1/2) |
|---|---|---|
| Gamète A (1/2) | AA : 1/4 | Aa : 1/4 |
| Gamète a (1/2) | Aa : 1/4 | aa : 1/4 |
Lis le schéma. Croise un gamète de la ligne avec un gamète de la colonne, puis regroupe les quatre cases par génotype.
AA : 1/4, Aa : 1/2, aa : 1/4 ; parmi les trois cas sans phénotype, deux sont Aa.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionComment l'échiquier Aa × Aa permet-il de calculer une probabilité simple, conditionnelle ou portant sur deux descendants ?
Observations
- Chaque parent Aa produit des gamètes A et a à 1/2 dans le modèle.
- L'échiquier comporte AA, Aa, Aa et aa.
- Le phénotype étudié est associé à aa avec pénétrance complète dans le modèle récessif.
- Les deux fécondations sont indépendantes tant que les génotypes parentaux et les hypothèses restent fixes.
Hypothèses
- Un descendant a une probabilité 1/4 d'être aa dans le croisement Aa × Aa.
- Parmi les descendants sans phénotype, la probabilité d'être Aa devient 2/3 après conditionnement.
Preuves à fournir
- AA occupe une case sur quatre, Aa deux cases et aa une case.
- Sans phénotype, seules les trois cases AA, Aa et Aa restent : deux correspondent à Aa.
- Deux aa demandent deux fois l'événement 1/4 : 1/16.
- Au moins un aa se calcule par le complément d'aucun aa : 1 − 9/16 = 7/16.
Analyse guidée
L'échiquier donne d'abord P(aa) = 1/4. Pour le conditionnement, on ne compte plus que les trois cases sans phénotype : AA, Aa et Aa ; deux sont porteuses, donc P(Aa | sans phénotype) = 2/3. Pour deux descendants, la première fécondation n'impose aucun résultat à la seconde dans le modèle. On multiplie donc 1/4 par 1/4 pour deux aa et on utilise le complément pour obtenir au moins un aa : 1 − (3/4 × 3/4) = 7/16.
Diagnostic d’erreur
Indice observéRépondre 1/2 pour un descendant sans phénotype porteur, ou attendre une naissance aa parce que les précédentes ne l'étaient pas.
CauseLe conditionnement est oublié et les fécondations successives sont traitées comme une dette à compenser.
Correction expliquée
Pour la condition, enlève d'abord la case aa puis compte les génotypes restants. Pour deux descendants, repars à chaque fois des gamètes A/a à 1/2 et multiplie les probabilités des événements demandés.
Poursuivre avec l’abonnement
Des chromosomes aux résultats des croisements
Lis l’arbre fictif, suis les chromosomes et comprends les croisements avec les schémas et cas expliqués.
Compare les six fréquences, résous les dossiers de transfert et entraîne-toi avec les questions corrigées et les cartes.
12 questions · 12 cartes. La reprise de ce cours est enregistrée localement dans ton navigateur.
Voir les offres Déjà abonné ? Se connecterVérifier et prolonger
Sources du cours
Édition Maxdecours · Vérifié le .
Spécialité biologie-écologie, Première de la voie générale agricole : maladies monogéniques et brassages génétiques.
- Programme de l’enseignement de spécialité de biologie-écologie de première et terminale généraleMinistère de l’Agriculture, ChloroFil · consulté le 2026-09-08
- Arrêté du 23 juillet 2019 fixant le programme de biologie-écologieLégifrance · consulté le 2026-09-08
- Cadrage de l'épreuve terminale de biologie-écologie à compter de la session 2024Bulletin officiel du ministère de l'Agriculture · consulté le 2026-09-08
- Arrêté du 19 juin 2026 sur le choix entre biologie-écologie et sciences de la vie et de la TerreLégifrance · consulté le 2026-09-08
- Évaluation des compétences expérimentales en biologie-écologieChloroFil, ministère de l'Agriculture · consulté le 2026-09-08
- Accompagnement Première, génétique, environnement et santéInspection de l’enseignement agricole, 2019 · consulté le 2026-09-08
- Cystic fibrosisMedlinePlus Genetics, National Library of Medicine, actualisé le 6 juillet 2021 · consulté le 2026-09-08
- The Process of MeiosisClark, Douglas et Choi, OpenStax Biology 2e, 2018 · consulté le 2026-09-08
- Laws of InheritanceClark, Douglas et Choi, OpenStax Biology 2e, 2018 · consulté le 2026-09-08
- The Mechanism of Mendelian HeredityMorgan, Sturtevant, Muller et Bridges, Henry Holt, 1915 · consulté le 2026-09-08
© 2026 Maxdecours.com · Comprendre et progresser