
Biologie-écologie · Première
Comment l'environnement modifie-t-il un phénotype ?
L’environnement peut modifier l’activité des gènes et le devenir des ARN sans modifier leur séquence d’ADN. Pour un gène eucaryote codant une protéine, transcription, maturation puis traduction relient une séquence à une chaîne d’acides aminés.
Explications et exemples en accès libre. Ateliers, quiz et cartes avec l’abonnement.
Prévoir mon tempsExplications et exemples en accès libre
Une première étude des explications, schémas, exemples résolus et erreurs expliquées. Les activités, productions, quiz et cartes réservés à l’abonnement ne sont pas comptés ici.
- Comprendre1909 mots d’explication et 4 schémas et 1 document
- 13 à 22 min
- Étudier les exemples et les erreurs4 cas, exemples et activités guidés
- 12 à 20 min
Étude du cours en accès libre, environ25 min à 45 min
Voir le calcul et le temps par étape
Le calcul suit automatiquement les explications et les tâches présentes dans le cours. Ses coefficients sont des repères de planification, pas des temps mesurés auprès d’élèves.
- Lecture active : 1909 mots, à raison de 160 à 220 mots par minute.
- Schémas : 4, avec 1 à 2 min pour lire chacun.
- Cas scientifique : 4 × 3 à 5 min.
- 5 outils de référence (1 à 2 min chacun).
- Passer de l’ADN à une chaîne protéique6 à 12 min
- Relier une protéine à sa fonction cellulaire6 à 11 min
- Distinguer les niveaux de contrôle6 à 10 min
- Comparer des normes de réaction5 à 10 min
Les sous-totaux sont arrondis à la minute, puis additionnés. La fourchette totale est élargie aux cinq minutes voisines. Les étapes ci-dessus comprennent leurs explications et exemples ; elles ne s’ajoutent pas une seconde fois au total.
Adapte ce repère à tes acquis et au soin apporté aux exercices. Les pauses, les reprises, la consultation des sources externes et les révisions suivantes s’ajoutent selon tes besoins.
Avec les ateliers, les analyses documentaires, le quiz et les cartes : environ 1 h 10 à 2 h 05, à répartir sur plusieurs séances.
Objectifs du cours
Ce que tu vas savoir faire
- Transcrire un brin matrice, retirer un intron de l’ARN et lire les codons fournis.
- Relier séquence, conformation, activité et localisation d’une protéine.
- Distinguer contrôle de la transcription, maturation et stabilité de l’ARN.
- Comparer des expressions relatives sans les assimiler à une quantité de protéine.
- Lire des normes de réaction pour séparer les effets du génotype et du milieu.
Repère visuel Biologie-écologie
De l’information au caractère observé
À chaque étape, identifie le support, le mécanisme et ce que le document mesure réellement.
- 1Changer de supportTranscris l’ADN, mature l’ARN puis traduis les codons en acides aminés.
- 2Relier structure et fonctionDistingue quantité de protéine, activité, localisation et effet cellulaire.
- 3Identifier une régulationSépare production, maturation et stabilité de l’ARN pour interpréter sa quantité.
- 4Comparer les phénotypesSuis un génotype dans plusieurs milieux et compare les réponses de plusieurs génotypes.
Une comparaison solide ne saute pas un niveau de preuve : davantage d’ARN n’établit pas à lui seul davantage de protéine ni une modification adaptative du phénotype.
Étape du cours · 6 à 12 min
Passer de l’ADN à une chaîne protéique
Un gène codant pour une protéine est une portion d’ADN dont la séquence peut être transcrite. Dans une cellule eucaryote, la transcription utilise un brin d’ADN comme matrice dans le noyau. L’ARN produit porte une séquence complémentaire et antiparallèle à cette matrice : l’information n’est donc ni transportée par le brin d’ADN lui-même ni directement transformée en protéine. Distinguer le support, la séquence lue et le compartiment permet de suivre chaque étape sans confondre gène, ARN et protéine.
Le premier produit est un pré-ARNm. Sa maturation comprend notamment le retrait des introns et la réunion des exons dans un ARN messager. Une coiffe et une queue poly-A contribuent à la stabilité et au devenir de cet ARN ; les régions non traduites participent aussi à son organisation. L’épissage agit sur l’ARN : la séquence d’ADN du gène n’est pas découpée. De plus, un exon n’est pas forcément traduit dans toute sa longueur, car un ARNm comporte aussi des régions non traduites.
L’ARNm maturé est transporté du noyau vers le cytoplasme, où un ribosome lit sa séquence par groupes de trois nucléotides appelés codons. Le court fragment du dossier applique le code génétique standard : AUG correspond à la méthionine, GCU à l’alanine et UUU à la phénylalanine. UGA est un codon stop : il termine la traduction et ne correspond pas à un acide aminé ajouté à la chaîne. La succession des codons détermine ainsi l’ordre de la chaîne polypeptidique produite.
Une même séquence d’ADN ne suffit pas à prédire tout le phénotype. Il faut encore savoir si le gène est transcrit, quel ARN mature est conservé, quelle protéine est produite, comment elle se replie et où elle agit. Cette chaîne d’étapes donne des objets observables distincts : une variation de séquence, une abondance d’ARNm ou une activité protéique ne sont pas le même indicateur. La suite du cours relie précisément les caractéristiques de la protéine à ses fonctions dans la cellule.
Pour analyser une séquence, fixe d’abord l’orientation et le rôle du brin présenté. Écris ensuite l’ARN complémentaire à la matrice, retire les introns indiqués uniquement sur le pré-ARNm, puis sépare l’ARNm maturé en codons à partir du signal de départ donné. Cette méthode évite deux erreurs fréquentes : lire la matrice comme un brin codant et prolonger la chaîne au-delà d’un codon stop. Elle fournit un raisonnement traçable plutôt qu’une simple traduction par reconnaissance visuelle.
Voir pour comprendre
Du brin matrice à la chaîne Met-Ala-Phe
La grille suit les supports successifs et conserve la distinction entre intron ARN et codon stop.
| Support et étape | Séquence ou résultat du modèle |
|---|---|
| ADN matrice, noyau | 3′-TAC CGA [intron] AAA ACT-5′ |
| Pré-ARNm | 5′-AUG GCU [intron ARN] UUU UGA-3′ |
| ARNm maturé | 5′-AUG GCU UUU UGA-3′ |
| Traduction cytoplasmique | Met-Ala-Phe ; UGA = arrêt |
Lis le schéma. Lis les lignes dans l’ordre, puis compare ce qui est retiré pendant la maturation et ce qui termine la traduction.
L’intron disparaît du pré-ARNm maturé ; UGA arrête la lecture sans ajouter d’acide aminé.
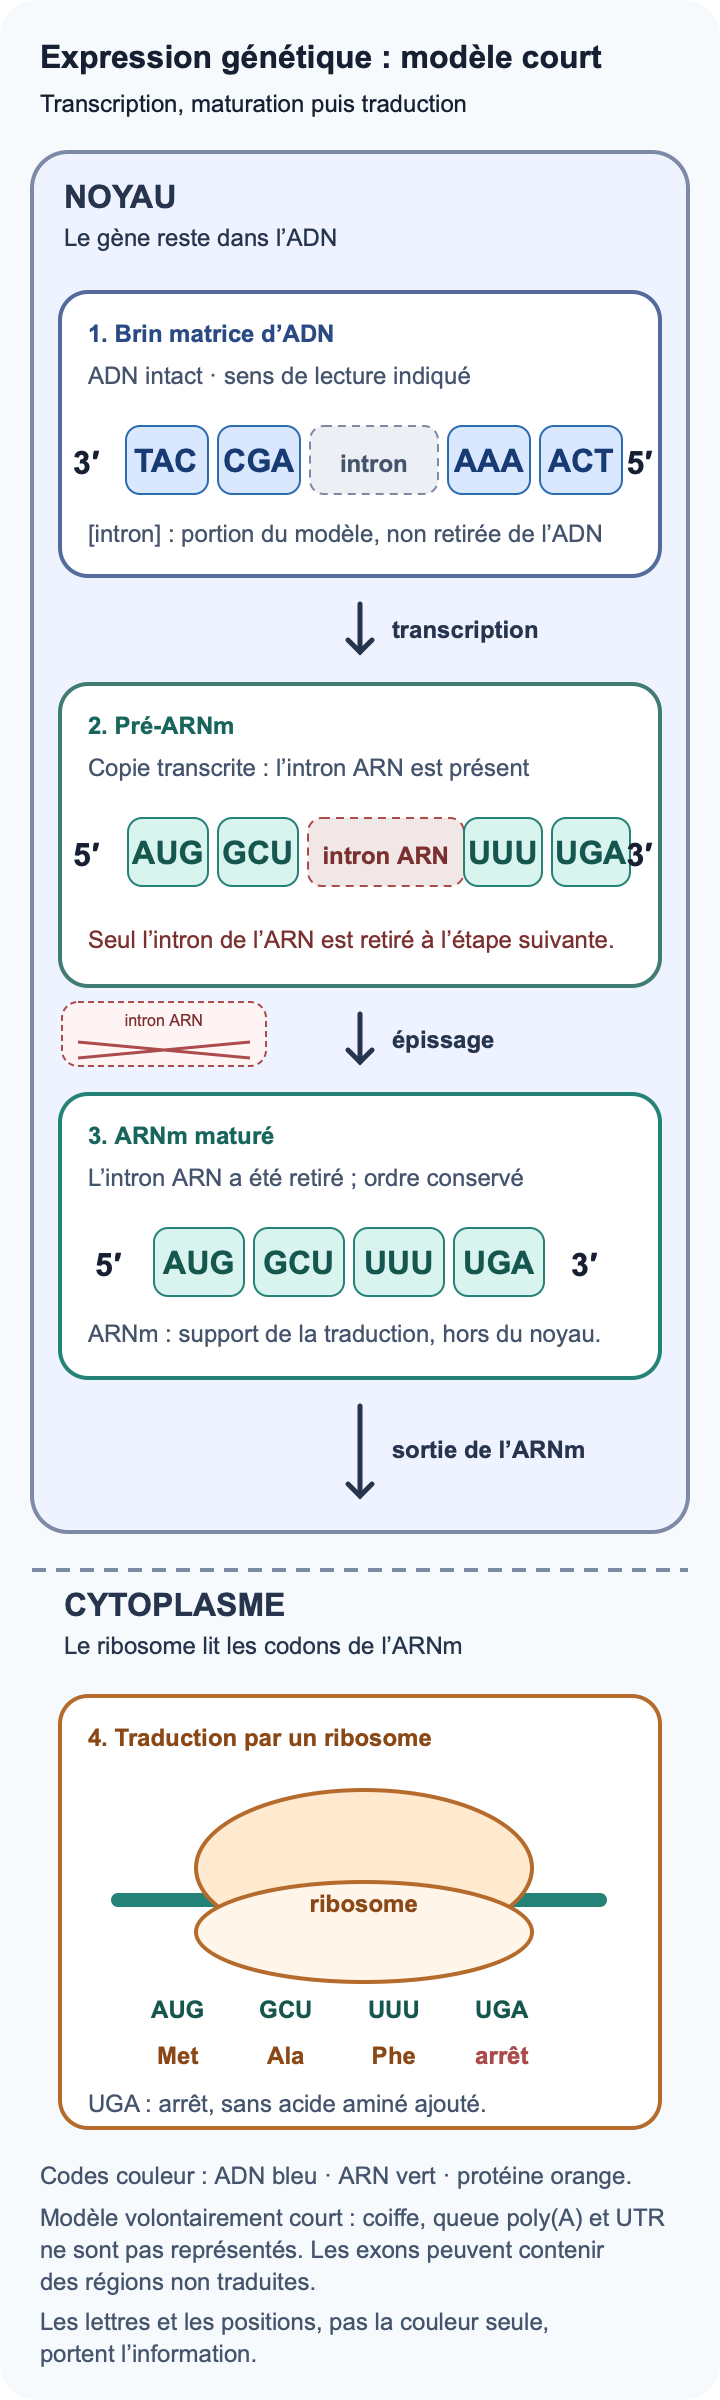
Modèle eucaryote court : le brin matrice d’ADN est conservé, tandis que l’intron du pré-ARNm est retiré par épissage avant la traduction.
Les séquences sont un modèle de démonstration : 3′-TAC CGA [intron] AAA ACT-5′ donne le pré-ARNm 5′-AUG GCU [intron ARN] UUU UGA-3′, puis l’ARNm maturé 5′-AUG GCU UUU UGA-3′. Le ribosome associe AUG à Met, GCU à Ala et UUU à Phe ; UGA est un codon stop sans acide aminé. La coiffe, la queue poly(A) et les UTR ne sont pas représentés.
Maxdecours, dessin pédagogique original · Illustration originale Maxdecours · vérifié le 08/09/2026
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionComment reconstruire la chaîne polypeptidique produite par un gène eucaryote dans le modèle de séquence fourni ?
Observations
- Le brin matrice est écrit 3′-TAC CGA [intron] AAA ACT-5′.
- Le pré-ARNm complémentaire est 5′-AUG GCU [intron ARN] UUU UGA-3′.
- La maturation retire l’intron ARN et donne l’ARNm 5′-AUG GCU UUU UGA-3′.
- Dans le code génétique standard appliqué à ce court fragment, AUG code Met, GCU Ala, UUU Phe et UGA est un signal d’arrêt.
Hypothèses
- La transcription est complémentaire du brin matrice et la maturation agit sur le pré-ARNm avant la traduction.
- L’intron est retiré de l’ADN, ce qui modifierait directement le gène avant sa transcription.
- UGA ajouterait un quatrième acide aminé à la chaîne produite.
Preuves à fournir
- La complémentarité TAC vers AUG puis CGA vers GCU respecte les orientations opposées de la matrice et de l’ARN.
- L’intron est signalé dans le pré-ARNm mais il n’apparaît plus dans l’ARNm maturé présenté.
- Le découpage de l’ARNm en AUG, GCU, UUU, UGA conduit à trois codons d’acides aminés suivis d’un arrêt.
- La chaîne déduite est Met-Ala-Phe ; aucun acide aminé n’est associé à UGA dans ce modèle.
Analyse guidée
Le brin fourni est une matrice écrite de 3′ vers 5′ : son complément ARN s’écrit donc de 5′ vers 3′. Le pré-ARNm contient un intron qui est retiré lors de la maturation, sans supprimer la région correspondante de l’ADN. L’ARNm retenu est lu par codons : AUG donne Met, GCU donne Ala et UUU donne Phe. UGA arrête la traduction. Le dossier soutient donc la chaîne Met-Ala-Phe et le passage ADN matrice → pré-ARNm → ARNm → protéine, sans établir à lui seul la forme tridimensionnelle ni la fonction de cette protéine.
Diagnostic d’erreur
Indice observéSupprimer l’intron de la séquence d’ADN ou ajouter un acide aminé après avoir lu UGA.
CauseLes supports ADN et ARN sont confondus, et le codon stop est traité comme un codon codant.
Correction expliquée
Garde l’ADN matrice intact, retire l’intron seulement du pré-ARNm, puis arrête la chaîne dès UGA : Met-Ala-Phe.
Étape du cours · 6 à 11 min
Relier une protéine à sa fonction cellulaire
Une protéine est une chaîne d’acides aminés dont la séquence contribue à la conformation tridimensionnelle. Cette forme rend possibles certaines interactions avec d’autres molécules ou structures cellulaires. L’activité biochimique, la localisation et les partenaires d’une protéine sont cependant des informations distinctes : connaître une séquence ne suffit pas toujours à les déduire toutes. Pour raisonner sur un phénotype, il faut donc relier plusieurs niveaux plutôt que réduire une protéine à un simple nom.
Une protéine peut être utilisée dans la cellule où elle est produite ou être exportée hors de cette cellule. Une localisation compatible avec une fonction rend une hypothèse plus cohérente, mais elle ne remplace pas une mesure de cette fonction. De même, une même quantité de protéine ne garantit pas une même activité : une modification de conformation peut modifier la région qui interagit avec le substrat ou avec un partenaire. Le dossier du cours compare ces grandeurs au lieu de les supposer équivalentes.
Le document structural synthétique compare deux versions d’une enzyme. Dans le segment représenté, P1 porte Gly-Lys-Tyr et P2 Gly-Glu-Tyr. La représentation textuelle place le résidu central dans le site de liaison : le groupe positif de Lys est complémentaire du groupe négatif S− du substrat modèle, tandis que Glu présente un groupe négatif face à S−. Cette différence de séquence et de surface de liaison fournit un mécanisme possible pour distinguer les interactions de P1 et P2. Elle n’énonce pas qu’une variation de séquence modifie toujours la forme ou la fonction d’une protéine.
Dans un second document synthétique, P1 et P2 sont présentes à quantité égale dans des extraits préparés de façon identique. Avec le même substrat, P1 transforme 84 unités arbitraires en dix minutes et P2 en transforme 21. Ce résultat mesure une différence d’activité dans les conditions du dossier. Avec le document structural, il est cohérent avec l’hypothèse que la complémentarité représentée du site de liaison participe à cette activité différente. Il ne mesure ni la quantité de protéine dans une cellule entière, ni un effet chez un organisme, ni une cause moléculaire unique.
La séquence, la conformation, l’activité, la localisation et le phénotype forment donc une chaîne de relations à tester. Une variation de séquence peut modifier une conformation ; celle-ci peut modifier une interaction ou une activité ; une fonction cellulaire modifiée peut contribuer à un caractère observable. Chaque flèche demande une preuve adaptée. Cela empêche d’affirmer qu’une quantité d’ARN, une présence protéique ou une activité isolée explique automatiquement un phénotype complet.
Dans un document comparatif, commence par identifier ce qui est maintenu constant et l’indicateur réellement mesuré. Si les quantités de P1 et P2 sont égales et que le substrat, la durée et le milieu sont indiqués identiques, l’écart d’activité concerne les versions de l’enzyme dans ce modèle. Propose ensuite une hypothèse structurale ou de localisation, mais présente-la comme une piste à vérifier par un document qui mesure effectivement la forme ou la position de la protéine.
Voir pour comprendre
Ce que compare le dossier P1–P2
La grille relie une complémentarité structurale représentée à une activité mesurée dans deux documents synthétiques.
| Élément comparé | Ce que le dossier permet de dire |
|---|---|
| Séquence et site représenté | P1 : Gly-Lys-Tyr, Lys+ face à S− ; P2 : Gly-Glu-Tyr, Glu− face à S− |
| Hypothèse structurale | Complémentarité locale de P1 avec le substrat modèle |
| Activité en extraits | Quantités égales ; P1 : 84, P2 : 21 unités en dix minutes |
| Localisation et phénotype | Non mesurés par les deux documents synthétiques |
Lis le schéma. Lis le modèle du site de liaison, puis les conditions identiques de l’essai avant de borner la conclusion à l’activité mesurée.
Le modèle structural explique une interaction possible de P1 avec S− ; l’essai mesure ensuite une activité plus élevée de P1, sans conclure sur tout organisme.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionQue permet de conclure la comparaison synthétique de deux versions P1 et P2 d’une même enzyme ?
Observations
- Document structural synthétique : P1 porte Gly-Lys-Tyr et P2 Gly-Glu-Tyr dans le segment représenté du site de liaison.
- Dans cette représentation textuelle, Lys+ de P1 est face au groupe S− du substrat modèle ; Glu− de P2 est face au même groupe S−.
- Document d’activité synthétique : P1 et P2 sont à quantité égale dans des extraits identiques ; avec le même substrat pendant dix minutes, P1 transforme 84 unités et P2 21.
- Aucune mesure de localisation, de phénotype d’organisme ou de structure complète de la protéine n’est fournie.
Hypothèses
- La complémentarité représentée entre le site de P1 et S− peut contribuer à une activité plus élevée de P1 dans les conditions comparées.
- La substitution Lys vers Glu modifie nécessairement toute la conformation et toute fonction de n’importe quelle protéine.
- P1 et P2 ont nécessairement des quantités différentes dans les cellules d’origine.
Preuves à fournir
- Le document structural relie explicitement la substitution Lys vers Glu à une différence de complémentarité locale avec S− dans le modèle.
- La quantité de protéine est déclarée égale, ce qui écarte dans le modèle l’explication par une dose différente dans les extraits.
- Substrat, milieu et durée identiques rendent comparables les nombres 84 et 21 ; l’indicateur est la quantité transformée en dix minutes.
- La structure complète, la localisation et le phénotype ne sont pas mesurés ; la représentation structurale n’établit pas une règle pour toute variation de séquence.
Analyse guidée
Le document structural construit un mécanisme : dans le site représenté, Lys+ de P1 est complémentaire de S−, alors que Glu− de P2 présente la même charge que S−. Le document d’activité donne ensuite une conséquence compatible avec ce mécanisme : P1 transforme quatre fois plus de substrat que P2 dans le même temps, soit 84/21 = 4. Quantités égales, substrat, milieu et durée identiques isolent l’activité des extraits dans ce modèle. La représentation ne prouve pas que toute substitution modifie une protéine, ni une localisation particulière, ni un phénotype d’organisme.
Diagnostic d’erreur
Indice observéAffirmer que toute mutation change forcément la forme d’une protéine, ou que l’essai démontre directement un phénotype.
CauseLa représentation structurale du modèle et l’activité dans les extraits sont confondues avec une règle générale ou une observation d’organisme.
Correction expliquée
Relie la substitution à la complémentarité représentée, puis à l’activité mesurée dans cet essai ; réserve la localisation et le phénotype à des mesures distinctes.
Étape du cours · 6 à 10 min
Distinguer les niveaux de contrôle
Dans une cellule eucaryote, un facteur de transcription est une protéine qui participe au contrôle de la transcription de certains gènes. Des signaux intracellulaires ou extracellulaires peuvent modifier son activité ou sa présence. Une hormone est une molécule messagère : dans l'organisme animal, elle est libérée dans la circulation et agit sur des cellules capables de la reconnaître. Des perturbateurs endocriniens peuvent imiter, bloquer ou perturber cette signalisation. Ils illustrent une façon dont le milieu peut influencer une régulation, sans que tout signal agisse sur tous les gènes ou dans toutes les cellules.
La chromatine associe l'ADN à des protéines. Des marques épigénétiques et l'organisation de cette chromatine participent à rendre une région plus ou moins accessible aux acteurs de la transcription. Elles constituent un niveau de régulation sans modifier la suite des nucléotides. L'effet d'une marque dépend de sa nature, de son emplacement et du contexte cellulaire : aucune règle unique ne permet d'associer toute méthylation à une activation ou à une répression.
Le contrôle se poursuit après la transcription. Un pré-ARNm peut subir des épissages alternatifs : des ARNm différents peuvent alors provenir d'un même précurseur. La stabilité de l'ARNm influence aussi sa durée de présence dans la cellule. Une variation d'abondance d'ARN ne mesure donc ni directement la vitesse de transcription ni automatiquement la quantité d'une protéine fonctionnelle.
James, Syed et leurs collègues ont étudié chez Arabidopsis des gènes de l'horloge dans des changements de température. Ils rapportent des variantes d'épissage dont la fréquence dépend de la température. Pour LHY, le refroidissement augmente des transcrits non productifs alors que, dans leur comparaison, la force du promoteur LHY ne varie pas. Ces résultats soutiennent un contrôle post-transcriptionnel de l'abondance des transcrits fonctionnels dans ce système.
Le résultat ne transforme pas toutes les différences d'ARN en preuve d'un épissage identique. Les auteurs montrent des réponses différentes selon les gènes et signalent que l'accès aux protéines reste limité pour la plupart des gènes étudiés. Le dossier permet ainsi de distinguer deux explications : une transcription modifiée et une maturation ou une stabilité modifiée. Une mesure du promoteur, un profil d'ARNm et une mesure protéique ne répondent pas à la même question.
Pour analyser un document, on commence par nommer le niveau observé : accessibilité de la chromatine, activité transcriptionnelle, variante d'ARN, abondance d'ARN ou protéine. On relie ensuite le signal et la mesure sans les confondre avec la séquence d'ADN. Cette méthode permet de comprendre comment un milieu peut contribuer à modifier l'expression génétique, tout en conservant la distinction entre génotype, régulation et phénotype.
Voir pour comprendre
Un signal, plusieurs niveaux de contrôle
Chaque ligne désigne une mesure ou un mécanisme distinct, sans transformer l'un en preuve de l'autre.
| Niveau | Ce que l'on peut observer ou conclure |
|---|---|
| Chromatine et facteurs de transcription | Accessibilité ou activité de transcription selon le contexte cellulaire |
| Maturation du pré-ARNm | Variantes d'épissage différentes issues d'un même précurseur |
| Stabilité de l'ARNm | Durée de présence et abondance de l'ARN dans la cellule |
| Dossier modèle : promoteur 100/100, isoformes 80/20 puis 30/70 | Total d'ARN identique ; changement de répartition des isoformes, pas de protéine mesurée |
Lis le schéma. Lis la colonne de gauche avant d'interpréter l'effet d'un signal sur l'expression d'un gène.
Une différence de quantité d'ARN peut provenir de la transcription, de la maturation ou de la stabilité de l'ARN.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionComment le dossier modèle distingue-t-il le contrôle du promoteur, l'épissage et la fonction protéique ?
Observations
- Dans le modèle, l'activité relative du promoteur vaut 100 unités sous le signal 1 comme sous le signal 2.
- Le total d'ARN vaut 100 unités relatives dans les deux conditions, avec la même référence stable.
- Sous le signal 1, l'isoforme A représente 80 % et l'isoforme B 20 % ; sous le signal 2, A représente 30 % et B 70 %.
- Le dossier annonce l'isoforme A productive et l'isoforme B non productive ; aucune protéine n'est mesurée.
Hypothèses
- Le signal 2 modifie la répartition des isoformes au cours d'un contrôle post-transcriptionnel dans le modèle.
- Une variation de la force du promoteur ne serait soutenue que si son activité différait entre les deux signaux.
Preuves à fournir
- Promoteur : 100 − 100 = 0 unité relative de différence entre les signaux.
- Total d'ARN : 100 − 100 = 0 unité relative de différence entre les signaux.
- Isoforme A : 80 % − 30 % = 50 points de pourcentage de moins sous le signal 2.
- Isoforme B : 70 % − 20 % = 50 points de pourcentage de plus sous le signal 2.
Analyse guidée
Le promoteur et le total d'ARN restent à 100 unités relatives dans les deux conditions : le dossier ne soutient pas une différence d'activité du promoteur ni une différence de total d'ARN. En revanche, la proportion de l'isoforme A productive passe de 80 % à 30 %, tandis que B non productive passe de 20 % à 70 %. Le résultat soutient une modification post-transcriptionnelle de la répartition des isoformes. La quantité de protéine fonctionnelle reste inconnue, car elle n'est pas mesurée.
Diagnostic d’erreur
Indice observéConclure que le signal 2 diminue la transcription, ou calculer 50 % comme une quantité de protéine connue.
CauseLes niveaux de contrôle transcriptionnel, maturation de l'ARN, stabilité de l'ARN et fonction protéique sont confondus.
Correction expliquée
Sépare les trois niveaux : promoteur identique, total d'ARN identique, proportions d'isoformes différentes. Conclus à une régulation post-transcriptionnelle des isoformes et garde la protéine comme information manquante.
Étape du cours · 5 à 10 min
Comparer des normes de réaction
La plasticité phénotypique désigne la variation d'un caractère produite par un même génotype dans des environnements différents. Une norme de réaction représente cette variation : pour un génotype donné, on place les milieux en abscisse et le caractère mesuré en ordonnée. Elle ne mesure pas directement une part de l'individu attribuable aux gènes ou au milieu.
Pour mettre en évidence une norme de réaction, il faut conserver le génotype puis comparer plusieurs milieux avec un trait défini et une unité. Pour comparer le rôle des génotypes, il faut ensuite répéter les mêmes milieux pour plusieurs génotypes. Des lignes parallèles traduisent des réponses de même amplitude dans le modèle ; des pentes différentes montrent que les génotypes ne répondent pas de façon identique aux milieux étudiés.
Le dossier synthétique du cours décrit deux génotypes de plantes-modèles, G1 et G2, à 20 °C, 25 °C et 30 °C, notés M1, M2 et M3. Même âge et autres conditions identiques sont annoncés. Le caractère mesuré est la longueur moyenne de feuille, en mm : G1 donne 12, 18 puis 22 mm ; G2 donne 15, 17 puis 18 mm. Pour G1, l'écart de longueur entre 30 °C et 20 °C vaut 10 mm ; pour G2, il vaut 3 mm.
Scheepens, Deng et Bossdorf ont comparé onze génotypes d'Arabidopsis soumis à différents calendriers de stress thermique. Les réponses dépendent du moment du stress et du génotype. Pour la fécondité et l'allocation reproductrice, l'effet de la fréquence varie aussi selon le moment du stress ; pour l'allocation, cette interaction dépend en outre du génotype. Ces résultats montrent l'intérêt de comparer plusieurs réponses au milieu, au lieu d'attribuer un effet identique à tous les génotypes.
Ce travail ne donne pas une règle d'adaptation pour toute population. Les auteurs signalent que les onze génotypes proviennent de régions diverses, ce qui limite l'extrapolation à une population naturelle. Leur étude ne fournit pas non plus le mécanisme moléculaire d'une réponse précise. Elle ne doit donc pas être enchaînée à un dossier de régulation distinct comme s'ils démontraient une même chaîne causale.
Une norme de réaction renseigne une comparaison délimitée : génotypes, milieux, caractère et unité. Elle n'établit pas une réversibilité automatique lorsqu'un organisme change de milieu, ni une estimation d'héritabilité individuelle. La conclusion utile décrit d'abord les écarts mesurés, puis indique si les réponses des génotypes sont semblables ou différentes dans les conditions du dossier.
Voir pour comprendre
Deux normes de réaction dans un modèle
Les longueurs de feuille sont des données synthétiques exprimées en mm.
| Milieu du modèle | G1 : longueur moyenne de feuille | G2 : longueur moyenne de feuille |
|---|---|---|
| M1 : 20 °C | 12 mm | 15 mm |
| M2 : 25 °C | 18 mm | 17 mm |
| M3 : 30 °C | 22 mm | 18 mm |
| Écart de longueur entre 20 °C et 30 °C | +10 mm | +3 mm |
Lis le schéma. Compare d'abord les longueurs à 20 °C et à 30 °C pour chaque génotype, puis compare les deux amplitudes.
De 20 °C à 30 °C, G1 varie de 10 mm et G2 de 3 mm : le modèle montre des réponses différentes selon le génotype.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionQue montre la comparaison de deux normes de réaction dans le dossier synthétique ?
Observations
- G1 : longueur moyenne de feuille de 12 mm à 20 °C, 18 mm à 25 °C et 22 mm à 30 °C.
- G2 : longueur moyenne de feuille de 15 mm à 20 °C, 17 mm à 25 °C et 18 mm à 30 °C.
- Même âge et autres conditions identiques sont annoncés ; la température est la variable de milieu dans le modèle.
- Le dossier décrit des plantes-modèles : il ne suit ni descendants ni retour vers un milieu antérieur.
Hypothèses
- Si les deux génotypes répondent de même façon à la température, leurs écarts de longueur entre 20 °C et 30 °C seront semblables.
- Si les amplitudes diffèrent, une interaction génotype-environnement est compatible avec les valeurs du modèle.
Preuves à fournir
- Pour G1, 22 − 12 = 10 mm entre 20 °C et 30 °C.
- Pour G2, 18 − 15 = 3 mm entre 20 °C et 30 °C.
- Les deux normes de réaction montent avec la température, mais leurs pentes ne sont pas identiques.
- Le même trait est mesuré aux mêmes températures pour les deux génotypes fictifs.
Analyse guidée
Les deux génotypes ont une longueur de feuille différente entre 20 °C et 30 °C : il y a donc une variation phénotypique dans ce dossier. Le calcul des amplitudes donne +10 mm pour G1 et +3 mm pour G2. On ne réduit pas ce résultat à « la température agit seule » : les deux normes de réaction ont des pentes différentes. Dans les conditions synthétiques fournies, les données sont compatibles avec une interaction génotype-environnement pour ce trait ; elles ne donnent aucune information sur l'héritabilité individuelle ni sur un retour automatique à l'état initial.
Diagnostic d’erreur
Indice observéConclure que G1 est intrinsèquement meilleur, ou que le milieu explique tout puisque les deux lignes changent.
CauseLe niveau de départ et l'amplitude de réponse sont confondus, et les deux génotypes ne sont pas comparés dans les mêmes milieux.
Correction expliquée
Calcule pour chaque génotype l'écart entre 20 °C et 30 °C, puis compare les pentes. Ici, G1 varie de 10 mm et G2 de 3 mm : le dossier décrit des réponses différentes, non une valeur générale des génotypes.
Poursuivre avec l’abonnement
Du gène au phénotype
Suis les séquences du schéma, étudie les protéines et comprends les régulations grâce aux quatre cas corrigés.
Compare les six expressions d’ARN, résous les dossiers de transfert et entraîne-toi avec les questions corrigées et les cartes.
12 questions · 12 cartes. La reprise de ce cours est enregistrée localement dans ton navigateur.
Voir les offres Déjà abonné ? Se connecterVérifier et prolonger
Sources du cours
Édition Maxdecours · Vérifié le .
Spécialité biologie-écologie, Première de la voie générale agricole : expression génétique, phénotype et environnement.
- Programme de l’enseignement de spécialité de biologie-écologie de première et terminale généraleMinistère de l’Agriculture, ChloroFil · consulté le 2026-09-08
- Arrêté du 23 juillet 2019 fixant le programme de biologie-écologieLégifrance · consulté le 2026-09-08
- Cadrage de l'épreuve terminale de biologie-écologie à compter de la session 2024Bulletin officiel du ministère de l'Agriculture · consulté le 2026-09-08
- Arrêté du 19 juin 2026 sur le choix entre biologie-écologie et sciences de la vie et de la TerreLégifrance · consulté le 2026-09-08
- Évaluation des compétences expérimentales en biologie-écologieChloroFil, ministère de l'Agriculture · consulté le 2026-09-08
- How do genes direct the production of proteins?MedlinePlus Genetics, National Library of Medicine, actualisé le 26 mars 2021 · consulté le 2026-09-08
- RNA Processing in EukaryotesClark, Douglas et Choi, OpenStax Biology 2e, 2018 · consulté le 2026-09-08
- Eukaryotic Post-transcriptional Gene RegulationClark, Douglas et Choi, OpenStax Biology 2e, 2018 · consulté le 2026-09-08
- Analyzing Protein Structure and FunctionAlberts et al., Molecular Biology of the Cell, 4e édition, Garland Science, 2002 · consulté le 2026-09-08
- What is epigenetics?MedlinePlus Genetics, National Library of Medicine, actualisé le 11 juin 2021 · consulté le 2026-09-08
- What is heritability?MedlinePlus Genetics, National Library of Medicine, actualisé le 16 septembre 2021 · consulté le 2026-09-08
- Endocrine DisruptorsNational Institute of Environmental Health Sciences, NIH, revu le 6 mars 2026 · consulté le 2026-09-08
- Alternative Splicing Mediates Responses of the Arabidopsis Circadian Clock to Temperature ChangesJames, Syed et al., The Plant Cell 24, 961-981, 2012 ; DOI 10.1105/tpc.111.093948 · consulté le 2026-09-08
- Phenotypic plasticity in response to temperature fluctuations is genetically variable, and relates to climatic variability of origin, in Arabidopsis thalianaScheepens, Deng et Bossdorf, AoB PLANTS 10, ply043, 16 juillet 2018 ; DOI 10.1093/aobpla/ply043 · consulté le 2026-09-08
- Genetic code tables, 1: StandardInternational Nucleotide Sequence Database Collaboration, table standard maintenue avec NCBI · consulté le 2026-09-08
© 2026 Maxdecours.com · Comprendre et progresser