
Biologie-écologie · Première
Comment une cellule musculaire fournit-elle l'ATP ?
La cellule musculaire renouvelle l’ATP consommé par les têtes de myosine et les pompes cellulaires. La glycolyse fournit de l’ATP dans le cytosol ; la voie lactique régénère un transporteur nécessaire à sa poursuite.
Explications et exemples en accès libre. Ateliers, quiz et cartes avec l’abonnement.
Prévoir mon tempsExplications et exemples en accès libre
Une première étude des explications, schémas, exemples résolus et erreurs expliquées. Les activités, productions, quiz et cartes réservés à l’abonnement ne sont pas comptés ici.
- Comprendre1974 mots d’explication et 4 schémas et 1 document
- 13 à 23 min
- Étudier les exemples et les erreurs4 cas, exemples et activités guidés
- 12 à 20 min
Étude du cours en accès libre, environ25 min à 45 min
Voir le calcul et le temps par étape
Le calcul suit automatiquement les explications et les tâches présentes dans le cours. Ses coefficients sont des repères de planification, pas des temps mesurés auprès d’élèves.
- Lecture active : 1974 mots, à raison de 160 à 220 mots par minute.
- Schémas : 4, avec 1 à 2 min pour lire chacun.
- Cas scientifique : 4 × 3 à 5 min.
- 5 outils de référence (1 à 2 min chacun).
- Relier le sarcomère au cycle de l’ATP7 à 12 min
- Maintenir la glycolyse par la fermentation lactique6 à 11 min
- Localiser la respiration et comparer les bilans6 à 10 min
- Relier activité et adaptations cellulaires6 à 10 min
Les sous-totaux sont arrondis à la minute, puis additionnés. La fourchette totale est élargie aux cinq minutes voisines. Les étapes ci-dessus comprennent leurs explications et exemples ; elles ne s’ajoutent pas une seconde fois au total.
Adapte ce repère à tes acquis et au soin apporté aux exercices. Les pauses, les reprises, la consultation des sources externes et les révisions suivantes s’ajoutent selon tes besoins.
Avec les ateliers, les analyses documentaires, le quiz et les cartes : environ 1 h 10 à 2 h 10, à répartir sur plusieurs séances.
Objectifs du cours
Ce que tu vas savoir faire
- Identifier la ligne Z et relier une électronographie au modèle du sarcomère.
- Calculer un glissement avec des filaments de longueur constante.
- Distinguer ATP net de glycolyse et régénération de NAD+ par fermentation.
- Relier matrice, membrane interne, gradient et ATP synthase.
- Comparer des bilans d’ATP sans les confondre avec un débit.
- Interpréter des indicateurs d’adaptation et les devenirs du glucose.
Repère visuel Biologie-écologie
Des filaments aux voies métaboliques
Observe une structure, suis les transformations puis compare les mesures.
- 1Lire le sarcomèreDes filaments constants glissent ; le cycle de myosine consomme de l’ATP.
- 2Suivre le NAD+La glycolyse forme l’ATP net ; la voie lactique régénère le transporteur.
- 3Relier les compartimentsLes électrons, le gradient et l’ATP synthase assurent le couplage respiratoire.
- 4Interpréter les adaptationsRéserve, activité enzymatique et fraction de volume sont des mesures distinctes.
Une même cellule relie consommation d’ATP, renouvellement continu et répartition de ses ressources.
Étape du cours · 7 à 12 min
Relier le sarcomère au cycle de l’ATP
Dans une fibre musculaire striée, les sarcomères se succèdent le long des myofibrilles. Un sarcomère contient des filaments fins d’actine et des filaments épais de myosine. Lorsqu’il se raccourcit, ces filaments ne deviennent pas eux-mêmes plus courts : ils glissent l’un par rapport à l’autre et leur zone de chevauchement augmente. Cette distinction permet de relier une organisation microscopique à la contraction sans attribuer aux filaments une propriété qu’ils n’ont pas. Les lignes Z délimitent un sarcomère ; les filaments fins y sont ancrés, tandis que les filaments épais occupent la région centrale. La bande A correspond à la longueur des filaments épais, avec une zone de chevauchement ; la bande I contient les filaments fins sans filaments épais.
La myosine porte des têtes capables de se lier temporairement à l’actine. Une tête liée peut exercer une traction ; la libération de phosphate inorganique, noté Pi, est associée à ce changement d’état. L’arrivée d’une nouvelle molécule d’ATP provoque le détachement de la tête de myosine. L’hydrolyse de cet ATP en ADP et Pi replace ensuite la tête dans un état apte à recommencer un cycle. Attachement, traction, détachement et réarmement sont donc des étapes distinctes.
L’ATP fournit un intermédiaire entre transformations chimiques et travail cellulaire. Sa fixation détache la tête de myosine ; son hydrolyse permet son réarmement. Il alimente aussi des pompes, notamment celles qui ramènent le calcium vers le réticulum sarcoplasmique, compartiment de stockage de la fibre. Ce retour participe au relâchement : utiliser de l’ATP n’est donc pas réservé à la phase de traction.
Un dossier géométrique peut rendre le glissement calculable. Si un sarcomère passe de 2,4 à 2,0 µm tandis que la myosine centrale reste longue de 1,6 µm et que chaque filament d’actine reste long de 1,0 µm, le chevauchement d’un côté passe de 0,6 à 0,8 µm. Les longueurs des filaments restent constantes ; la distance entre les lignes qui délimitent le sarcomère diminue. Ce dossier est un modèle construit, non une photographie ni une mesure sur une personne.
L’électronographie de Giolicc, datée de 2017, montre une ligne Z sombre en diagonale et une organisation striée de part et d’autre. Les profils comportant des replis internes sont identifiés comme mitochondries dans sa notice. Ce document fixe permet de repérer l’organisation ; le modèle séparé explique actine, myosine et glissement. Sans barre d’échelle ni deux états comparés, la photo ne mesure pas un raccourcissement. Une contraction peut également maintenir une tension sans raccourcissement global, comme dans le maintien d’une posture.
Voir pour comprendre
Du sarcomère au cycle de la myosine
Le tableau sépare la géométrie du glissement et les étapes du cycle ATP-myosine.
| État ou étape | Ce qui varie ou se produit |
|---|---|
| Sarcomère A → B | 2,4 → 2,0 µm ; les filaments gardent leur longueur |
| Chevauchement | 0,6 → 0,8 µm de chaque côté |
| ATP se fixe | La tête de myosine se détache de l’actine |
| ATP hydrolysé | La tête est réarmée pour un nouveau cycle |
| Pi libéré | La tête liée change d’état et exerce une traction |
Lis le schéma. Compare d’abord les longueurs constantes, puis suis les étapes qui rendent un nouveau cycle possible.
Des filaments de longueur constante se chevauchent davantage. La fixation puis l’hydrolyse de l’ATP rendent possible un nouveau cycle de myosine.
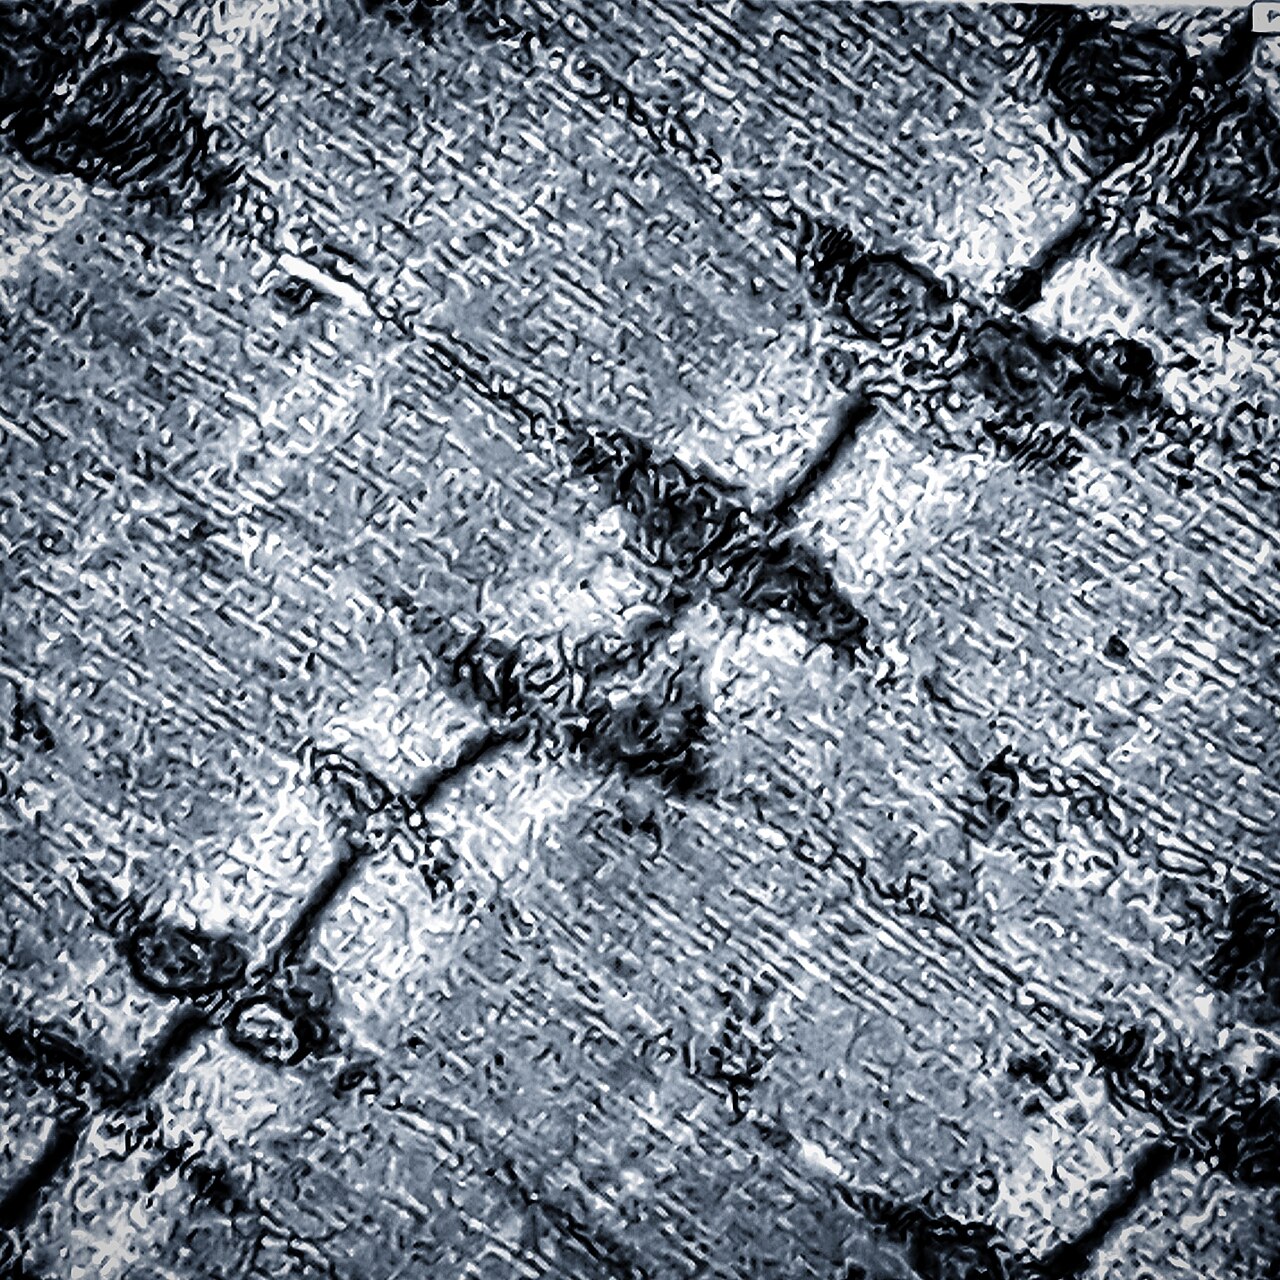
Électronographie en transmission datée du 15 novembre 2017. La ligne Z et les bandes montrent une organisation ; le modèle du cours explique séparément les filaments et leur glissement. Vignettes officielles sans recadrage ni annotation ajoutée.
Suis la ligne sombre du bas gauche vers le haut droit. De part et d’autre, observe les bandes et les profils à replis internes identifiés comme mitochondries par la notice. On repère une structure, sans identifier individuellement les molécules d’actine ou de myosine. Sans barre d’échelle ni deux états comparés, cette photo ne donne pas de longueur réelle ou de variation de contraction. La licence est liée dans les sources.
Giolicc, via Wikimedia Commons · CC BY 4.0 · vérifié le 08/09/2026
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionComment deux états du même modèle de sarcomère expliquent-ils un raccourcissement sans raccourcir les filaments ?
Observations
- Modèle symétrique : filaments épais centrés et filaments fins ancrés aux deux lignes Z, dirigés vers le centre. La distance Z-Z vaut 2,4 µm dans A puis 2,0 µm dans B.
- La longueur du filament épais de myosine est fixée à 1,6 µm dans les deux états.
- Chaque filament fin d’actine est fixé à 1,0 µm dans les deux états.
- Le chevauchement actine-myosine est de 0,6 µm par côté dans A et de 0,8 µm par côté dans B.
Hypothèses
- Le sarcomère se raccourcit par augmentation du chevauchement entre filaments de longueurs constantes.
- Le raccourcissement observé pourrait provenir d’un raccourcissement des filaments eux-mêmes.
Preuves à fournir
- La longueur du sarcomère diminue de 0,4 µm entre A et B.
- La longueur de myosine reste 1,6 µm et celle de chaque actine reste 1,0 µm dans les deux états.
- Le chevauchement augmente de 0,2 µm de chaque côté, soit 0,4 µm au total.
- L’augmentation totale du chevauchement correspond à la diminution de longueur du sarcomère dans le modèle.
Analyse guidée
Le sarcomère raccourcit de 2,4 − 2,0 = 0,4 µm. Or les longueurs de myosine et d’actine sont identiques dans A et B : elles ne peuvent pas expliquer ce changement par raccourcissement. Le chevauchement gagne 0,2 µm à gauche et 0,2 µm à droite, soit 0,4 µm. Dans ce modèle, cette variation explique exactement la diminution de longueur. Le dossier soutient donc le glissement relatif des filaments ; il ne mesure ni une force, ni la vitesse du cycle des têtes de myosine. Avec la symétrie annoncée, le chevauchement par côté se calcule aussi : 1,0 + 1,6/2 − 2,4/2 = 0,6 µm dans A ; remplacer 2,4 par 2,0 donne 0,8 µm dans B.
Diagnostic d’erreur
Indice observéAffirmer que l’actine et la myosine raccourcissent parce que le sarcomère raccourcit.
CauseLa longueur de l’ensemble est confondue avec la longueur de chacun des filaments qui le composent.
Correction expliquée
Compare séparément longueur du sarcomère, longueurs des filaments et chevauchement : ici seuls le premier et le troisième changent.
Étape du cours · 6 à 11 min
Maintenir la glycolyse par la fermentation lactique
La glycolyse se déroule dans le cytosol. Elle transforme une molécule de glucose en deux molécules de pyruvate et fournit un bilan net de deux ATP par glucose dans le modèle étudié. Elle transforme aussi le cofacteur NAD+ en NADH. Le pyruvate est donc un carrefour : il peut entrer dans d’autres transformations, notamment celles associées à la respiration dans la mitochondrie, ou être converti en lactate. Le terme « net » tient compte des deux ATP consommés au début et des quatre formés ensuite : 4 − 2 = 2. NAD+ est un transporteur pouvant recevoir des électrons et de l’hydrogène ; sa forme réduite NADH peut ensuite les céder.
La fermentation lactique convertit le pyruvate en lactate dans le cytosol. Cette conversion réoxyde le NADH en NAD+, ce qui rend de nouveau ce cofacteur disponible pour la glycolyse. La fermentation ne fournit pas d’ATP directement : les deux ATP nets proviennent de la glycolyse. Son rôle est de maintenir cette voie possible lorsque la régénération du NAD+ par d’autres voies ne suit pas la demande du modèle cellulaire.
Respiration et fermentation ne sont pas deux interrupteurs qui s’excluent toujours dans une cellule musculaire. Le dioxygène peut être présent tandis que les voies métaboliques contribuent de façon différente selon les conditions et les instants. Une quantité plus élevée de lactate dans un milieu n’établit donc ni une absence totale de dioxygène ni une proportion exacte de chaque voie. Pour conclure, il faut relier l’indicateur à ce qu’il mesure réellement.
Le dossier de bilan permet de contrôler le mécanisme sans manipuler de cellules. Pour un glucose, la glycolyse forme deux pyruvates, donne deux ATP nets et deux NADH. Si les deux pyruvates deviennent deux lactates, les deux NADH sont réoxydés en deux NAD+. Le nombre d’ATP ne gagne pas d’unité supplémentaire à l’étape de fermentation : le gain net reste celui de la glycolyse. Cette comptabilité distingue production d’ATP et régénération d’un cofacteur.
Le lactate n’est pas une explication unique de la fatigue. Une baisse de performance peut dépendre de plusieurs paramètres du fonctionnement musculaire, et une concentration de lactate est un indicateur parmi d’autres. Dans le cours, la conclusion utile est plus précise : la fermentation lactique relie la conversion du pyruvate à la régénération du NAD+, ce qui permet à la glycolyse de se poursuivre pendant un temps dans les conditions du modèle.
L’atelier mesure une concentration finale de lactate dans le milieu extérieur à des cellules fictives. Il ne mesure ni le lactate intracellulaire ni un débit. Une concentration finale supérieure signifie davantage de lactate par litre à cet instant ; calculer une accumulation nette exigerait aussi la concentration initiale. Cette distinction empêche de transformer les six nombres en vitesse de glycolyse, quantité d’ATP ou mesure de fatigue.
Voir pour comprendre
Glycolyse et fermentation : deux fonctions à séparer
Bilan simplifié des transformations : les protons, l’eau, ADP et Pi ne sont pas tous figurés. On suit séparément le gain net d’ATP et le recyclage de NAD+.
- 1Glycolyse dans le cytosolGlucose → 2 pyruvates + 2 ATP nets + 2 NADH
- 2Voie lactique2 pyruvates + 2 NADH → 2 lactates + 2 NAD+
- 3Conséquence dans le modèleLe NAD+ redevient disponible ; aucun ATP direct n’est ajouté par la fermentation
Lis le schéma. Lis les produits de la glycolyse, puis vérifie ce qui est recyclé par la fermentation avant de compter l’ATP.
Les ATP nets sont produits pendant la glycolyse ; la voie lactique régénère le NAD+ en convertissant le pyruvate en lactate.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionQue démontre un bilan moléculaire construit sur glycolyse et fermentation lactique ?
Observations
- Dossier construit par molécule de glucose : la glycolyse cytosolique produit deux pyruvates, deux ATP nets et deux NADH.
- Dans la voie lactique figurée, chaque pyruvate devient une molécule de lactate.
- Chaque conversion de pyruvate en lactate transforme un NADH en NAD+.
- Le dossier ne fournit ni concentration de dioxygène, ni force, ni durée de fonctionnement musculaire.
Hypothèses
- La conversion en lactate régénère le NAD+ nécessaire à la poursuite de la glycolyse.
- La fermentation ajoute deux ATP supplémentaires au bilan de la glycolyse.
- La présence de lactate prouve à elle seule l’absence complète de dioxygène.
Preuves à fournir
- Deux NADH issus de la glycolyse sont réoxydés en deux NAD+ dans la voie lactique dessinée.
- Aucune ligne du bilan n’ajoute d’ATP lors de la conversion pyruvate → lactate.
- Les deux ATP nets sont déjà associés à la glycolyse dans le dossier.
- Aucune mesure de dioxygène ou de fatigue n’est fournie.
Analyse guidée
Le dossier montre une fonction de recyclage : deux NADH deviennent deux NAD+, ce qui rend à la glycolyse le cofacteur dont elle a besoin. Il montre aussi que l’ATP net est compté à la glycolyse : transformer les deux pyruvates en lactates ne rajoute pas d’ATP. On peut donc expliquer le maintien de la glycolyse dans ce modèle. En revanche, aucune donnée du dossier ne permet d’affirmer que le dioxygène a disparu ni d’attribuer une fatigue à une seule molécule.
Diagnostic d’erreur
Indice observéAjouter deux ATP au bilan lors du passage du pyruvate au lactate, ou expliquer toute fatigue par le lactate.
CauseLa production nette d’ATP par glycolyse est confondue avec la régénération du NAD+ par fermentation.
Correction expliquée
Compte les ATP à l’étape qui les produit, puis suis séparément NADH → NAD+ ; une concentration de lactate doit être interprétée avec les autres données disponibles.
Étape du cours · 6 à 10 min
Localiser la respiration et comparer les bilans
La glycolyse prépare du pyruvate dans le cytosol. Dans la respiration, celui-ci entre dans la mitochondrie et son carbone est progressivement oxydé dans la matrice jusqu’au CO2. Des transporteurs reçoivent les électrons retirés aux molécules carbonées. Les noms de tous les intermédiaires ne sont pas nécessaires pour suivre ces trois objets : carbone transformé, électrons transférés et ATP renouvelé.
La mitochondrie possède une membrane externe, une membrane interne repliée en crêtes, un espace entre elles et une matrice centrale. La chaîne respiratoire est un ensemble de protéines de la membrane interne : elle reçoit les électrons des transporteurs réduits, qui retrouvent une forme oxydée disponible. Le dioxygène reçoit finalement ces électrons et, avec des protons, forme de l’eau. Le carbone du CO2 vient du nutriment, pas d’une transformation du dioxygène en carbone.
Le transfert des électrons est couplé au déplacement de protons H+ depuis la matrice vers l’espace intermembranaire. Une différence de concentration et de charge se constitue de part et d’autre de la membrane interne : c’est un gradient électrochimique. Le retour de H+ vers la matrice à travers l’ATP synthase permet d’associer ADP et phosphate inorganique pour former de l’ATP. Chaîne, gradient et ATP synthase constituent ainsi des étapes reliées, pas trois noms interchangeables.
Le bilan théorique retenu ici pour un glucose additionne 2 ATP nets de glycolyse, 2 équivalents ATP formés directement dans la matrice, puis 26 ou 28 issus du couplage respiratoire. Le total vaut donc 30 ou 32. La différence dépend de la façon dont les électrons du NADH cytosolique rejoignent la chaîne, par des systèmes de transfert appelés navettes. Les hypothèses de couplage et les échanges de membrane influencent aussi le bilan réel ; ces nombres décrivent un modèle de calcul.
Compare le gain par glucose, pas seulement le mot « énergie ». La glycolyse suivie de la voie lactique garde 2 ATP nets par glucose ; la respiration complète en fournit environ 30 dans la convention choisie pour le dossier. Pour renouveler 120 unités de quantité d’ATP, il faut alors 120/2 = 60 unités de glucose dans le premier bilan, contre 120/30 = 4 dans le second. Il s’agit de proportions théoriques, pas d’une ration alimentaire ou d’une durée d’effort.
Un gain par glucose n’est pas un débit d’ATP par seconde. Deux voies peuvent contribuer simultanément au renouvellement, avec des parts différentes selon la demande et les ressources. L’énergie chimique des nutriments est convertie, une partie étant transférée par l’ATP et une autre dissipée sous forme de chaleur. L’ATP reste une molécule produite à partir d’ADP et de phosphate, puis consommée : il n’est ni une énergie créée ni une grande réserve de longue durée.
Voir pour comprendre
Trois compartiments, trois rôles
La localisation rend le bilan respiratoire intelligible.
| Lieu | Rôle dans le modèle |
|---|---|
| Cytosol | Glucose vers pyruvate, 2 ATP nets |
| Matrice | Carbone vers CO2, 2 équivalents ATP directs |
| Membrane interne | Électrons vers O2 ; gradient de H+ |
| ATP synthase | Retour de H+ vers la matrice, ATP formé |
Lis le schéma. Relie chaque lieu au devenir d'une molécule ou d'un transfert.
Rendement de bilan et débit de fourniture sont deux grandeurs différentes.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionComment comparer deux voies de renouvellement de l’ATP avec un bilan et des compartiments explicités ?
Observations
- Dossier théorique pour un glucose : glycolyse 2 ATP nets dans le cytosol ; matrice 2 équivalents ATP directs ; couplage respiratoire 26 ATP dans la convention choisie.
- La chaîne transporte des électrons jusqu’à O2 et déplace H+ vers l’espace intermembranaire ; l’ATP synthase permet un retour vers la matrice.
- La voie glycolyse puis lactate conserve seulement les 2 ATP nets de glycolyse. La quantité à renouveler est fixée à 120 unités d’ATP.
- Le dossier ne donne ni temps ni vitesse d’une voie ; il compare des quantités relatives.
Hypothèses
- L’oxydation complète demande moins de glucose pour la même quantité théorique d’ATP.
- Le bilan par glucose permettrait aussi de trouver la durée de renouvellement.
Preuves à fournir
- 2 + 2 + 26 = 30 ATP par glucose dans la convention respiratoire.
- 120/30 = 4 unités de glucose, contre 120/2 = 60 dans le bilan lactique.
- La direction de H+ à travers l’ATP synthase est espace intermembranaire vers matrice.
- Aucun temps n’est fourni pour transformer les quantités en débits.
Analyse guidée
On additionne les ATP formés à des étapes distinctes : 2 dans le cytosol, 2 équivalents dans la matrice et 26 par couplage respiratoire, soit 30. Le besoin théorique de glucose est 60 unités avec 2 ATP par glucose, contre 4 avec 30 : le rapport est 15. Le résultat compare un gain moléculaire, pas une vitesse. Le mécanisme relie réoxydation des transporteurs, gradient de H+ et ATP synthase ; O2 est l’accepteur final et le carbone du nutriment est libéré comme CO2.
Diagnostic d’erreur
Indice observéPrendre un bilan de 30 ATP par glucose pour une production de 30 ATP par seconde.
CauseLe dénominateur en quantité de glucose est remplacé sans preuve par une unité de temps.
Correction expliquée
Écris les unités dans chaque division : ATP/glucose donne un besoin en glucose ; obtenir ATP/seconde exigerait un temps mesuré.
Étape du cours · 6 à 10 min
Relier activité et adaptations cellulaires
Le glucose entrant dans la fibre n’a pas un seul devenir. Une partie peut être stockée sous forme de glycogène ; une autre fournit du pyruvate par glycolyse ; des molécules issues de ces voies alimentent aussi des biosynthèses. Selon l’activité, les demandes d’ATP, les réserves et les signaux cellulaires modifient les flux. Le glycogène du muscle constitue une réserve locale mobilisable : le stock de matière et le débit qui le traverse sont deux grandeurs différentes.
Former du glycogène demande des transformations et de l’énergie, notamment pour activer les unités de glucose. La synthèse de protéines consomme aussi de l’ATP. À l’inverse, la dégradation de nutriments peut soutenir son renouvellement. Les acides gras rejoignent des voies mitochondriales ; certains squelettes carbonés d’acides aminés peuvent rejoindre les voies centrales, tandis que les acides aminés servent également à construire des protéines. Ce réseau explique les carrefours métaboliques sans faire de chaque nutriment un produit obligatoirement transformé en ATP.
Dossier de flux construit : sur une période donnée, 100 unités de carbone, exprimées en équivalents glucose, sont réparties entre 40 vers le glycogène, 50 vers l’oxydation et 10 vers d’autres biosynthèses. Le total 40 + 50 + 10 = 100 vérifie la répartition annoncée. Les unités stockées ne sont pas autant d’ATP produits. Le dossier fixe ces trois destinations comme bilan simplifié ; il ne prétend pas mesurer une ration ou une répartition identique à chaque instant.
Une activité régulière peut modifier la capacité des voies existantes, par exemple la quantité de certaines protéines ou l’organisation mitochondriale. Pour étudier cette adaptation, il faut nommer l’objet mesuré. L’activité maximale de citrate synthase, enzyme mitochondriale, renseigne un marqueur biochimique dans des conditions d’analyse données ; ce n’est pas un comptage d’organites. Une fraction volumétrique décrit, elle, la part de volume cellulaire occupée par les mitochondries ; une hausse peut refléter leur taille, leur nombre ou les deux.
MacInnis et ses collègues (2017) ont comparé deux modalités chez dix jeunes hommes, chaque jambe étant attribuée au hasard à une modalité, sur deux semaines avec travail total et durée appariés. Le résumé rapporte une activité maximale de citrate synthase et une respiration rapportée à la masse plus élevées après la modalité intermittente. Mais la respiration normalisée par l’activité de cette enzyme ne change pas avec l’intervention. L’indicateur et son dénominateur modifient donc la conclusion ; ce résultat de recherche ne fournit pas un programme personnel.
Le cas chiffré suivant est fictif et distinct de cette étude. Dans un modèle de fibre suivi entre deux états, l’activité maximale de citrate synthase passe de 80 à 110 µmol/min/g de protéines, à méthode et normalisation identiques. La fraction volumétrique mitochondriale passe de 5 % à 6 %, avec la même méthode d’estimation. Les deux changements renseignent des propriétés différentes : ils ne mesurent ni une force, ni un débit total d’ATP, ni une performance future.
Voir pour comprendre
Deux mesures à ne pas confondre
Le dossier construit sépare fonction et structure.
| Mesure du modèle | Interprétation bornée |
|---|---|
| Activité enzymatique | 80 à 110 µmol/min/g : +37,5 % |
| Fraction de volume | 5 % à 6 % : +1 point, +20 % relatif |
| Nombre de mitochondries | Non mesuré par ces deux indicateurs |
Lis le schéma. Lis l'objet mesuré avant d'interpréter sa variation.
Un marqueur enzymatique ne compte pas directement les mitochondries.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionComment distinguer une adaptation fonctionnelle d'une adaptation structurelle ?
Observations
- Modèle fictif entre états A et B : activité maximale de citrate synthase 80 puis 110 µmol/min/g de protéines, conditions analytiques et normalisation identiques.
- Fraction volumétrique mitochondriale 5 % puis 6 % du volume de fibre, même méthode d’estimation.
- Il s’agit du même modèle suivi ; aucun groupe témoin ni effectif de personnes n’est fourni.
- Ces valeurs sont construites pour le calcul et ne sont pas celles de MacInnis et ses collègues.
Hypothèses
- Des modifications biochimiques et structurales peuvent accompagner une adaptation du modèle.
- Le marqueur enzymatique permettrait de compter exactement les mitochondries.
Preuves à fournir
- 80 vers 110 décrit +37,5 % de variation fonctionnelle dans le modèle
- 5 % vers 6 % décrit +20 % relatif et +1 point de variation structurelle
- un taux enzymatique n'est pas un comptage mitochondrial
- les mesures de biopsie sont situées dans un protocole de recherche
Analyse guidée
L’activité maximale augmente de 110 − 80 = 30 µmol/min/g de protéines, soit 30/80 × 100 = 37,5 %. La fraction volumétrique gagne 6 − 5 = 1 point de pourcentage ; relativement à 5 %, cela représente 1/5 × 100 = 20 %. On distingue donc marqueur enzymatique et fraction de volume. Une fraction volumétrique supérieure ne départage pas taille et nombre des mitochondries. Sans témoin, ces deux états fictifs décrivent un changement mais n’isolent pas la cause qui l’aurait produit.
Diagnostic d’erreur
Indice observéConclure qu'une hausse de citrate synthase prouve le nombre exact de mitochondries.
CauseUn marqueur enzymatique est pris pour une mesure structurale directe.
Correction expliquée
Nomme le marqueur, son unité et son type fonctionnel ; présente toute information structurale comme une mesure distincte.
Poursuivre avec l’abonnement
Des filaments aux bilans d’ATP
Les explications, quatre schémas et une électronographie légendée relient sarcomère, glycolyse, respiration et adaptations.
Calcule les bilans, compare les six concentrations fictives, consulte les corrections et entraîne-toi avec les questions et cartes.
12 questions · 12 cartes. La reprise de ce cours est enregistrée localement dans ton navigateur.
Voir les offres Déjà abonné ? Se connecterVérifier et prolonger
Sources du cours
Édition Maxdecours · Vérifié le .
Spécialité biologie-écologie, Première de la voie générale agricole : métabolisme de la cellule musculaire.
- Programme de l’enseignement de spécialité de biologie-écologie de première et terminale généraleMinistère de l’Agriculture, ChloroFil · consulté le 2026-09-08
- Arrêté du 23 juillet 2019 fixant le programme de biologie-écologieLégifrance · consulté le 2026-09-08
- Cadrage de l'épreuve terminale de biologie-écologie à compter de la session 2024Bulletin officiel du ministère de l'Agriculture · consulté le 2026-09-08
- Arrêté du 19 juin 2026 sur le choix entre biologie-écologie et sciences de la vie et de la TerreLégifrance · consulté le 2026-09-08
- Évaluation des compétences expérimentales en biologie-écologieChloroFil, ministère de l'Agriculture · consulté le 2026-09-08
- Exercise PhysiologyPatel, Horenstein et Zwibel, StatPearls, mise à jour 6 octobre 2024 · consulté le 2026-09-08
- Muscle Fiber Contraction and RelaxationOpenStax, Anatomy and Physiology 2e, 2022 · consulté le 2026-09-08
- How Cells Obtain Energy from FoodAlberts et al., Molecular Biology of the Cell, 4e édition, 2002 · consulté le 2026-09-08
- GlycolysisOpenStax, Biology 2e, 2018 · consulté le 2026-09-08
- Metabolism without OxygenOpenStax, Biology 2e, 2018 · consulté le 2026-09-08
- Oxidative PhosphorylationOpenStax, Biology 2e, 2018 · consulté le 2026-09-08
- Mitochondria structure, electron transport chain and oxidative phosphorylationDr Mulinge, université de Nairobi, support daté du 15 mars 2022 · consulté le 2026-09-08
- Connections of Carbohydrate, Protein, and Lipid Metabolic PathwaysOpenStax, Biology 2e, 2018 · consulté le 2026-09-08
- Superior mitochondrial adaptations in human skeletal muscle after interval compared to continuous single-leg cycling matched for total workMacInnis et al., Journal of Physiology 595, 2955-2968, 2017 ; première publication en ligne 11 juillet 2016 · consulté le 2026-09-08
- Electronic microscopy picture of a muscleGiolicc, document daté du 15 novembre 2017, Wikimedia Commons · consulté le 2026-09-08
- Creative Commons Attribution 4.0 InternationalCreative Commons · consulté le 2026-09-08
© 2026 Maxdecours.com · Comprendre et progresser