
Biologie-écologie · Terminale
Stress aigu, circulation et coordination immunitaire
Le fonctionnement intégré de l’organisme repose sur des organes reliés par des circulations et des messages. Le débit cardiaque dépend de la fréquence et du volume éjecté ; les voies nerveuses et hormonales participent à son adaptation et à la répartition du sang.
Explications et exemples en accès libre. Ateliers, quiz et cartes avec l’abonnement.
Prévoir mon tempsExplications et exemples en accès libre
Une première étude des explications, schémas, exemples résolus et erreurs expliquées. Les activités, productions, quiz et cartes réservés à l’abonnement ne sont pas comptés ici.
- Comprendre3578 mots d’explication et 7 schémas et 1 document
- 24 à 39 min
- Étudier les exemples et les erreurs7 cas, exemples et activités guidés
- 21 à 35 min
Étude du cours en accès libre, environ45 min à 1 h 15
Voir le calcul et le temps par étape
Le calcul suit automatiquement les explications et les tâches présentes dans le cours. Ses coefficients sont des repères de planification, pas des temps mesurés auprès d’élèves.
- Lecture active : 3578 mots, à raison de 160 à 220 mots par minute.
- Schémas : 7, avec 1 à 2 min pour lire chacun.
- Cas scientifique : 7 × 3 à 5 min.
- 5 outils de référence (1 à 2 min chacun).
- Relier la double circulation au débit cardiaque6 à 11 min
- Coordonner le cœur et la répartition du sang6 à 10 min
- Comprendre une boucle hormonale et son rétrocontrôle7 à 12 min
- Décrire des débits sans inventer leurs causes6 à 10 min
- Des barrières à l’activation d’une réponse spécifique5 à 10 min
- Sélectionner des clones et faire coopérer les effecteurs6 à 11 min
- Relier mémoire, vaccination et perturbation de la coopération6 à 11 min
Les sous-totaux sont arrondis à la minute, puis additionnés. La fourchette totale est élargie aux cinq minutes voisines. Les étapes ci-dessus comprennent leurs explications et exemples ; elles ne s’ajoutent pas une seconde fois au total.
Adapte ce repère à tes acquis et au soin apporté aux exercices. Les pauses, les reprises, la consultation des sources externes et les révisions suivantes s’ajoutent selon tes besoins.
Avec les ateliers, les analyses documentaires, le quiz et les cartes : environ 1 h 55 à 3 h 15, à répartir sur plusieurs séances.
Objectifs du cours
Ce que tu vas savoir faire
- Suivre la double circulation et calculer Q = FC × VES en conservant les unités.
- Distinguer pression, résistance, débit total et répartition entre organes.
- Relier CRH, ACTH et cortisol, puis expliquer le rétrocontrôle et le chevauchement des voies.
- Calculer une moyenne et une dispersion sans déduire des conditions absentes.
- Relier barrières, reconnaissance innée, inflammation et présentation antigénique.
- Expliquer la sélection clonale et les rôles des CD4, CD8, B, plasmocytes et phagocytes.
- Comparer mémoire spécifique, vaccination et apport passif, puis situer le VIH dans la coopération.
Repère visuel Biologie-écologie
Des organes reliés, des mécanismes distincts
Suis les messages et vérifie ce que chaque document permet de conclure.
- 1CalculerRelie fréquence, volume et débit.
- 2RégulerRepère les relais et le retour inhibiteur.
- 3CoopérerAssocie chaque cellule à sa fonction.
- 4ComparerTeste la spécificité d’une mémoire.
Un fonctionnement intégré associe des mécanismes différents, dont les preuves restent identifiables.
Étape du cours · 6 à 11 min
Relier la double circulation au débit cardiaque
Le sang relie les organes sans que tous les échanges aient lieu au même endroit. Dans les poumons, il échange des gaz avec l’air alvéolaire ; dans les tissus, il apporte notamment du dioxygène et des nutriments et emporte des produits du métabolisme. Les capillaires, à paroi fine, sont les principaux lieux de ces échanges. Le cœur entretient le mouvement du sang grâce à des différences de pression, tandis que les vaisseaux organisent ses trajets.
Suis une boucle complète : veines caves, oreillette droite, ventricule droit, artères pulmonaires, capillaires pulmonaires, veines pulmonaires, oreillette gauche, ventricule gauche, aorte, organes, puis retour veineux. Les circulations pulmonaire et générale se succèdent. Le mot artère désigne un vaisseau qui quitte le cœur, et veine un vaisseau qui y revient. Les artères pulmonaires transportent ainsi un sang moins riche en dioxygène que les veines pulmonaires : le nom du vaisseau ne donne pas son oxygénation.
Pendant un cycle cardiaque, le remplissage des ventricules alterne avec leur contraction puis leur relâchement. La systole ventriculaire élève leur pression et permet l’éjection lorsque la pression dépasse celle des artères de sortie. Les valvules s’ouvrent ou se ferment selon les différences de pression et limitent le reflux ; ce ne sont pas des pompes supplémentaires. Un ventricule n’éjecte pas tout son contenu à chaque contraction. Le volume d’éjection systolique, ou VES, est le volume effectivement éjecté par battement.
Le débit cardiaque Q est le volume éjecté par un ventricule en une minute. Il se calcule par Q = FC × VES, où FC est la fréquence cardiaque. Avec FC = 70 battements/min et VES = 70 mL/battement, les unités battement se simplifient : Q = 4 900 mL/min = 4,9 L/min. Ce sont des valeurs fictives de calcul, pas une consigne de mesure. À l’état stable, les deux ventricules assurent en moyenne le même débit ; additionner leurs débits compterait deux passages successifs du même volume dans le circuit.
Pour séparer les effets des deux paramètres, un modèle numérique impose quatre réglages : 70 et 70 donnent 4,9 L/min ; 100 et 70 donnent 7 L/min ; 70 et 80 donnent 5,6 L/min ; 100 et 80 donnent 8 L/min, avec les mêmes unités que précédemment. Changer seulement la fréquence ou seulement le VES ne produit pas ici la même variation. Une fréquence plus élevée ne suffit donc pas à connaître le débit si le VES reste inconnu.
Entre le premier et le dernier réglage, le débit augmente de 3,1 L/min. Les hausses isolées valent 2,1 et 0,7 L/min ; leur somme de 2,8 laisse 0,3 L/min, égal au produit des deux changements, 30 × 10/1 000. Ce terme croisé vient de la multiplication dans le modèle. Il ne démontre ni une coopération hormonale mesurée, ni un bénéfice de santé. Le calcul décrit des réglages imposés ; expliquer leur variation dans un organisme demande ensuite les mécanismes de régulation.
Voir pour comprendre
Quatre réglages, un calcul explicite
Modèle pédagogique Q = FC × VES ; valeurs fictives, non cliniques.
| Réglage | FC (battements/min) | VES (mL/battement) | Q (L/min) |
|---|---|---|---|
| Référence | 70 | 70 | 4,9 |
| Fréquence seule | 100 | 70 | 7 |
| Volume seul | 70 | 80 | 5,6 |
| Deux paramètres | 100 | 80 | 8 |
Lis le schéma. Lis chaque ligne en reliant les quatre colonnes.
Comparer des réglages connus permet de séparer les contributions arithmétiques.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionUne hausse de fréquence suffit-elle à expliquer le changement de débit du modèle ?
Observations
- Le modèle applique exactement Q = FC × VES ; aucune donnée humaine n’est utilisée.
- Référence : FC = 70 battements/min ; VES = 70 mL/battement.
- Fréquence seule : FC = 100 ; VES = 70. Volume seul : FC = 70 ; VES = 80, dans les mêmes unités.
- Deux paramètres : FC = 100 ; VES = 80. Il s’agit de quatre réglages déterministes, pas de quatre groupes de personnes.
Hypothèses
- La modification de fréquence seule reproduit toute la hausse du dernier réglage.
- Le changement du VES contribue aussi à la hausse, avec un terme croisé dans le produit.
Preuves à fournir
- Les quatre débits calculés sont 4,9 ; 7 ; 5,6 et 8 L/min.
- La fréquence seule donne une hausse de 2,1 L/min, inférieure à la hausse conjointe de 3,1 L/min.
- Le volume seul donne une hausse de 0,7 L/min ; le terme croisé vaut 0,3 L/min.
- Les paramètres sont imposés par le dossier : aucun lien hormonal n’est mesuré.
Analyse guidée
Le modèle ne soutient pas la première hypothèse : changer seulement la fréquence mène à 7 L/min, et non à 8. Le VES contribue au résultat. La décomposition 3,1 = 2,1 + 0,7 + 0,3 est une propriété du produit des paramètres. Elle ne transforme pas les quatre réglages en expérience sur une population. On rapporte le débit d’un ventricule et on convertit les millilitres en litres une seule fois.
Diagnostic d’erreur
Indice observéLa copie annonce 16 L/min parce que le cœur possède deux ventricules.
CauseElle additionne deux débits de circulations en série.
Correction expliquée
Suis le même volume dans les poumons puis les organes : chaque ventricule éjecte ici 8 L/min en moyenne, pas deux apports indépendants à additionner.
Étape du cours · 6 à 10 min
Coordonner le cœur et la répartition du sang
Une perturbation ou l’anticipation d’un effort peut mobiliser plusieurs organes avant même un mouvement. Les informations sensorielles et le contexte sont intégrés par des réseaux cérébraux auxquels participent notamment des structures limbiques, l’hypothalamus et le tronc cérébral. Le stress aigu désigne cette réponse coordonnée et limitée dans le temps. Il ne se réduit pas au sentiment d’inquiétude ; une même situation ne déclenche pas une réponse identique chez tous les individus.
Le système nerveux autonome module les fonctions involontaires. Dans la régulation cardiaque, l’activité sympathique favorise notamment l’accélération du rythme et l’augmentation de la force de contraction ; l’activité parasympathique peut ralentir le rythme. Le rythme naît dans le cœur : les nerfs le modulent, ils ne créent pas chaque battement. Les deux composantes ont une activité régulée ; le parasympathique n’attend pas nécessairement la fin de toute réponse pour intervenir.
De nombreuses terminaisons sympathiques libèrent de la noradrénaline au voisinage de leurs cellules cibles. Une autre voie sympathique stimule la médullosurrénale, partie centrale de la glande surrénale, qui libère notamment de l’adrénaline dans le sang. On distingue donc une communication nerveuse avec libération locale et une communication endocrine par la circulation. Une molécule n’agit que sur les cellules équipées de récepteurs appropriés ; passer dans le sang ne signifie pas agir de la même manière sur tous les organes.
Dans la circulation générale, les organes sont alimentés par des branches principalement disposées en parallèle. Leur débit dépend de la différence de pression entre l’entrée et la sortie et de leur résistance au passage du sang. Le calibre des artérioles participe fortement à cette résistance. Pendant un effort, les commandes nerveuses, les hormones et les signaux locaux des tissus contribuent à la répartition du débit. Il serait inexact de résumer toutes les réponses vasculaires par « la noradrénaline dilate tous les vaisseaux des muscles ».
Dans un modèle simplifié d’écoulement, Q = ΔP/R. Si ΔP vaut 90 mmHg et R vaut 90 mmHg·min/L, le débit vaut 1 L/min ; à même ΔP, une résistance de 45 donne 2 L/min. La pression est une force rapportée à une surface, tandis que le débit est un volume par durée : leurs unités et leurs rôles diffèrent. Une même pression d’entrée ne suffit pas non plus sans connaître la pression de sortie, puisque c’est leur différence qui intervient.
Le transport disponible pour un organe dépend à la fois du débit reçu et du contenu du sang en substances transportées. Augmenter le débit ne crée pas du dioxygène ou du glucose. L’approvisionnement associe circulation, échanges pulmonaires et disponibilité des nutriments. Le cœur et les résistances vasculaires participent ainsi à une coordination ; leur relation ne permet pas de déduire un état de santé à partir d’un chiffre isolé.
Voir pour comprendre
Ne pas confondre pression et débit
Quatre scénarios indépendants d’un modèle simplifié.
| Scénario | ΔP (mmHg) | R (mmHg·min/L) | Q (L/min) |
|---|---|---|---|
| U | 90 | 90 | 1 |
| V | 90 | 45 | 2 |
| W | 60 | 60 | 1 |
| X | 120 | 120 | 1 |
Lis le schéma. Lis chaque ligne en reliant les quatre colonnes.
Le rapport ΔP/R, et non ΔP seule, donne le débit de ce modèle.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionUne pression plus élevée garantit-elle un débit plus élevé dans une branche ?
Observations
- Le dossier est un modèle d’écoulement stationnaire, sans mesure sur une personne.
- Les différences de pression ΔP sont en mmHg et les résistances R en mmHg·min/L.
- Quatre branches étudiées séparément ont les couples (ΔP ; R) suivants : U (90 ; 90), V (90 ; 45), W (60 ; 60), X (120 ; 120).
- Dans chaque calcul, Q = ΔP/R ; ces quatre scénarios ne sont pas les débits simultanés d’un même organisme.
Hypothèses
- Classer les différences de pression suffit à classer les débits.
- Le rapport entre différence de pression et résistance détermine le débit du modèle.
Preuves à fournir
- U et V ont la même différence de pression mais des débits de 1 et 2 L/min.
- W et X ont des différences de pression distinctes mais le même débit de 1 L/min.
- Le débit le plus élevé est celui de V, pas celui du scénario de plus forte pression X.
- Aucune concentration hormonale ni activité nerveuse n’est donnée.
Analyse guidée
Les quotients donnent U = 1, V = 2, W = 1 et X = 1 L/min. U/V isole l’effet d’une résistance divisée par deux à différence de pression constante. W/X montre que doubler simultanément le numérateur et le dénominateur ne change pas le débit. Ces calculs réfutent le classement par la seule pression. Ils ne permettent pas d’attribuer une résistance donnée à une hormone précise.
Diagnostic d’erreur
Indice observéLe scénario X est déclaré le mieux irrigué parce que 120 est la plus grande pression.
CauseLa résistance et la pression de sortie sont oubliées ; une différence de pression est confondue avec un débit.
Correction expliquée
Calcule ΔP/R avec les unités. X donne 1 L/min et V 2 L/min : la grandeur comparée est un volume par minute.
Étape du cours · 7 à 12 min
Comprendre une boucle hormonale et son rétrocontrôle
La coordination du stress associe aussi l’axe hypothalamo-hypophyso-corticosurrénalien. Le nom décrit trois relais, pas trois régions voisines d’une seule glande. Dans le schéma simplifié, l’hypothalamus libère la CRH, qui stimule la sécrétion d’ACTH par l’hypophyse antérieure. L’ACTH circule jusqu’à la corticosurrénale, partie externe de la glande surrénale, et stimule la production de cortisol.
Le cortisol participe à la mobilisation de ressources énergétiques, notamment en favorisant la production de glucose. Ses effets portent sur plusieurs tissus et processus. On ne doit pas en déduire que toute réponse immunitaire disparaît dès qu’une personne rencontre une perturbation. La durée, l’intensité, le contexte et les fonctions considérées comptent. Décrire une régulation hormonale n’est ni mesurer le stress vécu ni prévoir individuellement une maladie.
La voie sympathique et l’axe hormonal n’ont pas les mêmes délais dominants, mais ils peuvent fonctionner en même temps. Pour lire leur évolution, on peut examiner une table fictive : aux temps 0, 2, 10, 30 et 60 min, un indice d’adrénaline vaut 1 ; 4 ; 2 ; 1 ; 1, tandis qu’un indice de cortisol vaut 1 ; 1,2 ; 2 ; 3 ; 1,4. Chaque indice est rapporté à sa propre valeur initiale, et n’exprime donc pas une concentration absolue commune aux deux hormones.
À 2 et 10 min, les deux indices du dossier sont supérieurs à leur référence : leur élévation se chevauche. Le maximum observé de l’un précède celui de l’autre. La table permet de décrire cette succession relative, pas d’imposer à chaque organisme un calendrier minute par minute. Elle ne prouve pas non plus que la hausse d’adrénaline provoque celle du cortisol : les deux peuvent dépendre d’une commande commune.
Le cortisol exerce un rétrocontrôle négatif sur l’hypothalamus et l’hypophyse : son action en retour limite la sécrétion de CRH et d’ACTH. Le signe négatif décrit une inhibition, pas un effet forcément nocif. Ce retour agit sur des étapes en amont, au lieu d’être une simple action de la corticosurrénale sur elle-même. La boucle contribue à limiter l’amplitude et la durée de la réponse ; elle n’est pas un interrupteur qui attend que tout soit terminé.
Pour rechercher ce retour inhibiteur, une courbe simultanée de deux hormones ne suffit pas. Il faut comparer des situations où l’action de retour est présente ou empêchée, avec un stimulus et des conditions comparables. Dans un document expérimental, on demanderait notamment quel récepteur est visé, quelle variable est mesurée et si d’autres voies sont affectées. Dans un schéma, une flèche de stimulation et une liaison d’inhibition doivent avoir des légendes distinctes. Le retour progressif vers un fonctionnement régulé mobilise plusieurs mécanismes, pas uniquement la baisse d’une concentration.
Voir pour comprendre
Identifier les relais et le sens du message
Schéma fonctionnel simplifié de la coordination endocrine, sans échelle temporelle.
| Signal | Source | Cible retenue | Action dans le circuit |
|---|---|---|---|
| CRH | Hypothalamus | Hypophyse antérieure | Stimule la sécrétion d’ACTH |
| ACTH | Hypophyse antérieure | Corticosurrénale | Stimule la sécrétion de cortisol |
| Cortisol | Corticosurrénale | Hypothalamus et hypophyse | Freine les sécrétions en amont |
| Adrénaline | Médullosurrénale | Cellules munies de récepteurs | Voie distincte, activée par le sympathique |
Lis le schéma. Lis chaque ligne en reliant les quatre colonnes.
Distingue le centre et la périphérie de la surrénale, puis repère la boucle de retour.
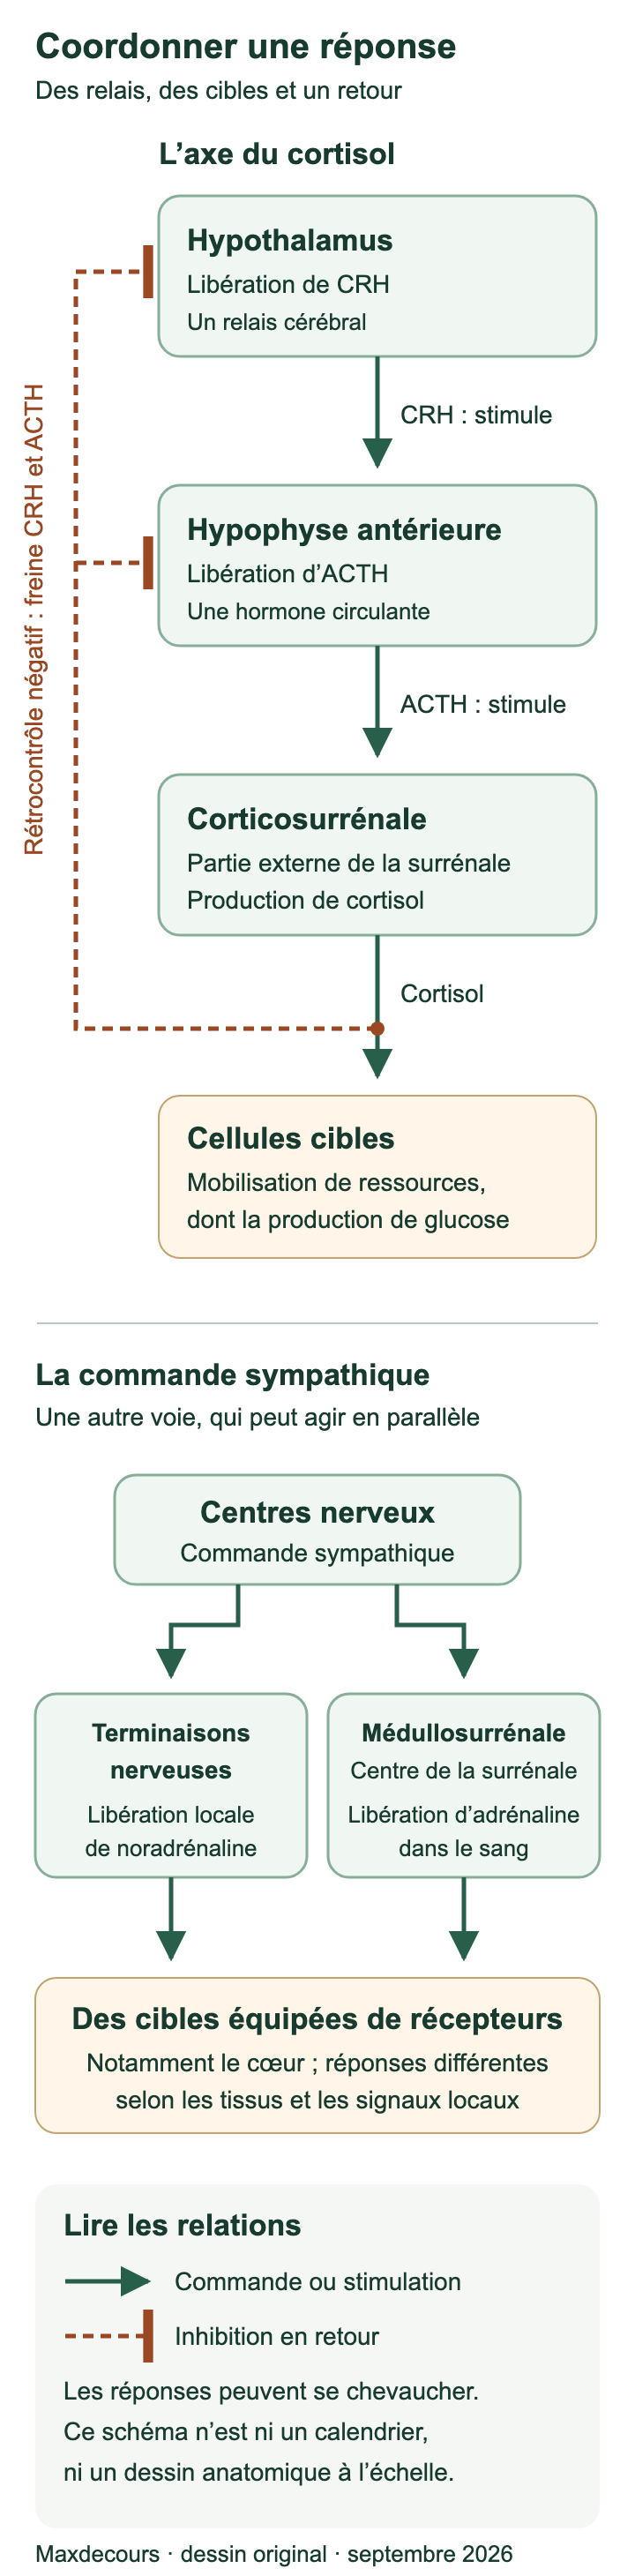
Les flèches continues indiquent une commande ou une stimulation. Les liaisons pointillées terminées par une barre indiquent l’inhibition en retour du cortisol sur l’hypothalamus et l’hypophyse. Les réponses peuvent se chevaucher : le schéma n’est pas un calendrier.
Schéma fonctionnel original des relais et médiateurs, avec distinction médullosurrénale/corticosurrénale et deux cibles du rétrocontrôle. Aucune image scientifique externe ni donnée personnelle n’est reproduite.
Maxdecours, dessin pédagogique original · Illustration originale Maxdecours · vérifié le 12/09/2026
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionDeux maxima décalés démontrent-ils un relais sans chevauchement et un rétrocontrôle ?
Observations
- Document synthétique : temps 0, 2, 10, 30 et 60 min ; indices rapportés séparément à la valeur initiale de chaque hormone.
- Indice d’adrénaline : 1 ; 4 ; 2 ; 1 ; 1. Indice de cortisol : 1 ; 1,2 ; 2 ; 3 ; 1,4.
- Aucune unité de concentration absolue, intervention sur un récepteur ni répétition indépendante n’est fournie.
- Les valeurs décrivent une illustration temporelle ; elles ne proviennent pas d’un prélèvement ni d’un suivi humain.
Hypothèses
- Les deux élévations se succèdent sans période commune.
- Les deux élévations peuvent se chevaucher malgré des maxima observés à des temps différents.
Preuves à fournir
- À 2 min, les deux indices sont supérieurs à 1 : 4 et 1,2.
- À 10 min, les deux indices valent 2 ; l’élévation est encore simultanée.
- Les maxima consignés sont 4 à 2 min et 3 à 30 min, chacun sur sa propre échelle relative.
- Le dossier ne modifie pas l’action du cortisol sur l’hypothalamus ou l’hypophyse.
Analyse guidée
Le chevauchement à 2 et 10 min écarte la première hypothèse. Le maximum d’adrénaline consigné est plus précoce, mais deux valeurs relatives ne comparent pas des concentrations absolues. La baisse ultérieure est compatible avec une régulation, sans isoler un rétrocontrôle. Pour tester ce mécanisme, il faudrait une comparaison ciblée de l’action en retour, et non seulement deux courbes qui montent puis baissent.
Diagnostic d’erreur
Indice observéLa copie affirme que l’adrénaline est absente dès que le cortisol augmente.
CauseElle transforme un décalage des maxima en séparation stricte des réponses et confond référence et absence.
Correction expliquée
Repère les deux valeurs de chaque instant : elles dépassent ensemble 1 à 2 et 10 min. Une valeur de 1 signifie le niveau de référence de l’indice, pas une concentration nulle.
Étape du cours · 6 à 10 min
Décrire des débits sans inventer leurs causes
Un débit en L/min est un volume par unité de temps, pas une fréquence cardiaque. Les mêmes 6 L/min peuvent résulter, dans le modèle Q = FC × VES, de 100 battements/min et 60 mL/battement ou de 75 battements/min et 80 mL/battement. Connaître le résultat du produit ne suffit pas à retrouver ses deux facteurs. Un tableau de débits ne devient donc pas un tableau de fréquences simplement parce que les deux grandeurs concernent le cœur.
Pour s’entraîner à décrire une série, un dossier autonome donne quatre valeurs fictives : D1 = 4, D2 = 6, D3 = 8 et D4 = 10 L/min. Elles expriment la même grandeur, chaque ligne a le même poids et les identifiants ne sont pas des dates. La somme vaut 28 L/min ; la moyenne arithmétique est 28/4 = 7 L/min. Cette moyenne résume les nombres du dossier, sans représenter une valeur observée supplémentaire ni une référence médicale.
L’étendue est la différence entre maximum et minimum : 10 − 4 = 6 L/min. Pour calculer l’écart-type d’échantillon, on soustrait 7 à chaque valeur, ce qui donne −3, −1, 1 et 3 L/min. La somme des carrés des écarts vaut 20 (L/min)². Avec le dénominateur n − 1 = 3, la variance d’échantillon vaut 20/3 et l’écart-type s = √(20/3), soit environ 2,582 L/min. La racine ramène à l’unité du débit.
Le mot échantillon précise ici la convention de calcul avec n − 1 ; il ne prouve pas un tirage aléatoire dans une population. Avec une division par n, le résultat serait différent. L’écart-type n’est ni une fréquence, ni un intervalle de confiance, ni une marge d’erreur que l’on pourrait ajouter à toute mesure. Une petite dispersion peut coexister avec un biais systématique si un instrument surestime toutes les valeurs.
Une représentation claire conserve un point par identifiant et une unité explicite sur l’axe vertical. La ligne de moyenne complète les observations sans les remplacer. On ne relie pas D1 à D4 comme des instants successifs : aucune chronologie n’est fournie. De même, un code « référence » ou « réponse aiguë » doit être accompagné des conditions effectivement documentées avant de construire une comparaison expérimentale. Un nom de ligne ne définit pas à lui seul des groupes homogènes.
Pour interpréter une variation de débit, il faut d’autres informations : définition de la mesure, réglages de fréquence et de VES, conditions maintenues identiques, répétitions pertinentes et précision. Une moyenne globale peut être calculée sans que sa comparaison à une norme ou son attribution au stress soit justifiée. Décrire ce qui est fourni, identifier ce qui manque et proposer le document discriminant sont trois étapes complémentaires du raisonnement scientifique.
Voir pour comprendre
Quatre opérations, quatre portées
Calculs sur le dossier fictif indépendant D1 à D4.
| Question | Opération | Résultat | Interprétation |
|---|---|---|---|
| Moyenne | 28/4 | 7 L/min | Résumé à poids égaux |
| Étendue | 10 − 4 | 6 L/min | Écart entre les extrêmes |
| Écart-type d’échantillon | √(20/3) | Environ 2,582 L/min | Dispersion avec n − 1 |
| Effet de la fréquence | FC et VES absents | Non identifiable | Il faut départager les facteurs |
Lis le schéma. Lis chaque ligne en reliant les quatre colonnes.
Le calcul garde l’unité du phénomène et une conclusion proportionnée au dossier.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionQue montrent les quatre valeurs D1 à D4, et que faudrait-il pour expliquer leur dispersion ?
Observations
- Dossier fictif indépendant : D1 = 4, D2 = 6, D3 = 8 et D4 = 10 L/min.
- Les quatre débits ont le même poids ; aucun instant, traitement ou individu ne leur est associé.
- Les fréquences cardiaques et les VES ne sont pas renseignés.
- Aucune précision instrumentale ni méthode d’échantillonnage n’est donnée.
Hypothèses
- Les valeurs permettent une description numérique de la série.
- La dispersion peut être attribuée à la seule fréquence sans autre mesure.
Preuves à fournir
- Somme = 28 L/min et moyenne = 7 L/min.
- Étendue = 6 L/min ; somme des carrés des écarts = 20 (L/min)².
- Écart-type d’échantillon = √(20/3) ≈ 2,582 L/min.
- Un débit de 6 L/min admet plusieurs couples FC/VES ; le produit seul ne les départage pas.
Analyse guidée
La première proposition est soutenue : les calculs résument les valeurs consignées. La seconde ne l’est pas, car les fréquences et les VES manquent. On représente quatre points distincts et leur moyenne sans courbe temporelle. Pour séparer les effets des paramètres, on peut demander des réglages connus comme dans le dossier factoriel de la première section, ou des mesures adaptées, plutôt que donner un sens causal aux identifiants.
Diagnostic d’erreur
Indice observéL’écart-type de 2,582 est interprété comme 2,582 battements supplémentaires par minute.
CauseLe calcul est privé de son unité et le débit est confondu avec la fréquence.
Correction expliquée
Conserve L/min et précise qu’il s’agit d’une dispersion des débits. Une fréquence en battements/min demanderait une mesure ou une information différente.
Étape du cours · 5 à 10 min
Des barrières à l’activation d’une réponse spécifique
La protection contre des agents pathogènes commence aux interfaces avec le milieu. La continuité de la peau et des épithéliums forme une barrière physique ; des sécrétions et des conditions chimiques contribuent à limiter l’installation de microorganismes. Le microbiote peut aussi participer à cette protection. Un microorganisme présent à une surface n’a pas nécessairement franchi la barrière ni provoqué une maladie. On distingue donc présence, pénétration et multiplication dans les tissus.
Lorsque les barrières sont franchies ou qu’un tissu est endommagé, l’immunité innée peut déclencher rapidement une réponse locale. Des cellules sentinelles portent des récepteurs reconnaissant des motifs microbiens ou des signaux de lésion. Dire que cette réponse est « non spécifique » signifie qu’elle ne repose pas sur la sélection d’un clone adapté à un antigène particulier ; cela ne veut pas dire qu’elle reconnaît tout au hasard. La reconnaissance précède la libération de médiateurs.
L’inflammation associe notamment modifications vasculaires et recrutement de leucocytes. Une dilatation locale augmente l’arrivée de sang ; une perméabilité accrue permet des échanges de liquide et de molécules, et des leucocytes quittent les vaisseaux. Ces mécanismes contribuent à la rougeur, la chaleur et le gonflement. Les signes inflammatoires ne désignent pas à eux seuls un microbe particulier : une lésion non infectieuse peut également déclencher une inflammation.
Des phagocytes, dont les macrophages et les neutrophiles, peuvent englober des particules puis les dégrader dans des compartiments intracellulaires. D’autres acteurs interviennent : les cellules NK peuvent contribuer à éliminer certaines cellules altérées, tandis que des médiateurs coordonnent les échanges entre cellules. Les rôles ne sont pas interchangeables : une cellule qui englobe une particule n’est pas pour autant un plasmocyte produisant des anticorps.
Une cellule dendritique peut capter du matériel antigénique dans un tissu puis rejoindre un organe lymphoïde secondaire, comme un ganglion drainant la zone. Elle y présente des fragments antigéniques à des lymphocytes T, accompagnés de signaux nécessaires à leur activation. Cette étape relie l’alerte locale à une réponse adaptative. La circulation des cellules et de la lymphe participe donc à la coordination, sans que le ganglion fabrique un anticorps pour chaque particule qui le traverse.
Un test de coopération doit distinguer la présence de l’antigène, la fonction de présentation et la capacité des lymphocytes à répondre. Observer une prolifération en présence de cellules dendritiques est une première information ; ajouter un témoin sans antigène et une condition où la présentation seule est empêchée affine l’interprétation. Un résultat dans un dispositif défini renseigne ce dispositif. Il ne mesure pas l’ensemble des défenses d’un organisme et ne justifie aucune manipulation de microbes ou de sang par l’élève.
Voir pour comprendre
Lire les témoins avant la conclusion
Modèle fictif, indice de prolifération des T à 72 h ; autres paramètres identiques.
| Condition | Antigène A | Présentation fonctionnelle | Indice |
|---|---|---|---|
| T + A | Présent | Absente | 1 |
| T + cellules dendritiques | Absent | Pas de A présenté | 1 |
| T + cellules dendritiques + A | Présent | Présente | 12 |
| Même ensemble, présentation empêchée | Présent | Empêchée dans le modèle | 2 |
Lis le schéma. Lis chaque ligne en reliant les quatre colonnes.
Le témoin sans antigène et la comparaison ciblée départagent deux explications.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionLa présence d’antigène suffit-elle à activer les lymphocytes T du dossier ?
Observations
- Modèle documentaire fictif : quatre conditions contiennent le même nombre initial de lymphocytes T naïfs compatibles et une viabilité identique.
- L’indice de prolifération à 72 h est rapporté au témoin T seuls, fixé à 1.
- Antigène A sans cellule présentatrice : 1 ; cellules dendritiques sans A : 1 ; cellules dendritiques présentant A : 12.
- Cellules dendritiques avec A mais présentation seule empêchée dans le modèle : 2. Les autres paramètres sont imposés identiques.
Hypothèses
- La seule présence d’antigène A suffit à produire la forte prolifération.
- Une présentation fonctionnelle de A participe à la forte activation dans ce dispositif.
Preuves à fournir
- La condition avec A seul reste à l’indice 1.
- Les cellules dendritiques sans A restent à l’indice 1.
- La condition avec présentation de A atteint 12.
- Empêcher la présentation réduit l’indice de 12 à 2 dans ce modèle, sans annuler tout le signal.
Analyse guidée
Les témoins ne soutiennent pas la suffisance de A seul. La comparaison 12 contre 2, à autres paramètres identiques par construction, soutient la participation de la présentation antigénique à l’activation. La réponse résiduelle à 2 ne doit pas être effacée. Ces valeurs pédagogiques illustrent un raisonnement contrôlé, pas les résultats attribuables à une expérience historique ou à des patients. Un dispositif réel devrait aussi vérifier la sélectivité de l’intervention et la viabilité.
Diagnostic d’erreur
Indice observéLa copie conclut que les lymphocytes T fabriquent les antigènes parce que l’indice augmente.
CauseElle confond l’élément reconnu, la cellule présentatrice et la variable de réponse mesurée.
Correction expliquée
Nomme chaque rôle : A est présenté, la cellule dendritique assure la présentation et l’indice décrit la prolifération des T.
Étape du cours · 6 à 11 min
Sélectionner des clones et faire coopérer les effecteurs
Un antigène porte des éléments reconnus spécifiquement par des anticorps ou des lymphocytes. Les anticorps et les récepteurs des B peuvent le reconnaître directement ; les T reconnaissent des fragments antigéniques présentés par des molécules du CMH. Il ne s’agit pas nécessairement d’un microbe entier. Avant une rencontre avec un antigène, l’organisme possède déjà une grande diversité de lymphocytes portant des récepteurs différents. L’antigène sélectionne des cellules capables de le reconnaître ; il ne dessine pas sur commande un récepteur identique sur toutes les cellules. Les clones sélectionnés se multiplient puis se différencient en cellules effectrices et, pour une partie, en cellules mémoire. La sélection, l’amplification et la différenciation sont trois étapes à distinguer.
Les lymphocytes B reconnaissent des éléments antigéniques par leurs récepteurs membranaires. Les lymphocytes T reconnaissent des fragments présentés par des molécules du complexe majeur d’histocompatibilité, ou CMH. La reconnaissance doit s’inscrire dans des interactions d’activation appropriées. La maturation des B s’effectue notamment dans la moelle osseuse, celle des T dans le thymus ; les rencontres activatrices ont lieu dans les organes lymphoïdes secondaires. Des mécanismes de tolérance limitent les réactions contre les constituants du soi.
Les lymphocytes T CD4 auxiliaires activés fournissent des signaux, dont des cytokines et des contacts cellulaires, qui soutiennent d’autres acteurs. Ils peuvent aider des B à se multiplier et à se différencier, et participent à l’organisation des réponses cellulaires. Les lymphocytes T CD8 devenus cytotoxiques peuvent éliminer des cellules de l’organisme présentant un antigène reconnu. Une cellule infectée et un microbe libre ne sont donc pas la même cible ; l’élimination d’une cellule infectée ne signifie pas que tous les agents libres ont disparu.
Des B activés se différencient en plasmocytes sécréteurs d’anticorps. Un anticorps est une protéine, pas une cellule. Une IgG typique comprend deux chaînes lourdes et deux chaînes légères, assemblées en Y. Aux deux extrémités, des régions variables constituent les sites de liaison à l’antigène ; la région constante participe aux interactions avec d’autres effecteurs. La liaison à un antigène forme un complexe immun et peut empêcher certaines interactions nécessaires à l’action d’une toxine ou à l’entrée d’un virus : c’est une neutralisation. La liaison ne provoque cependant pas automatiquement la destruction de tout ce qui est reconnu. Il faut distinguer reconnaissance, neutralisation et élimination.
Des anticorps fixés sur une cible peuvent faciliter sa capture par des phagocytes : cette facilitation est appelée opsonisation. Certaines classes d’anticorps peuvent aussi contribuer à activer le complément, ensemble de protéines intervenant dans plusieurs mécanismes de défense. La phagocytose et, dans certaines situations, la lyse complètent alors la reconnaissance. L’immunité adaptative mobilise ainsi des effecteurs qui coopèrent avec l’immunité innée, au lieu de la remplacer.
Pour tester une aide apportée par les CD4, on peut lire un document comparant une réponse avec ces cellules, sans elles, puis après leur réintroduction. Le nombre de B, leur viabilité et la quantité d’antigène doivent rester comparables. Une restauration de réponse soutient une contribution de la coopération dans le cadre étudié. On évite pourtant « aucun anticorps sans CD4 » : certaines réponses B peuvent se produire autrement, et le document doit préciser quel antigène et quel dispositif il représente.
Voir pour comprendre
Relier acteur, reconnaissance et effet
Rôles simplifiés dans une réponse adaptative coordonnée.
| Acteur | Ce qu’il reconnaît ou reçoit | Fonction retenue | À ne pas confondre |
|---|---|---|---|
| B puis plasmocyte | Antigène et signaux d’activation | Production d’anticorps après différenciation | B naïf et plasmocyte sécréteur |
| T CD4 auxiliaire | Fragment présenté et signaux d’activation | Aide à d’autres cellules | Coordination et sécrétion d’anticorps |
| T CD8 cytotoxique | Antigène présenté par une cellule cible | Élimination de la cellule cible | Cellule infectée et agent libre |
| Phagocyte | Cible reconnue, parfois recouverte d’anticorps | Capture puis dégradation | Reconnaissance et élimination |
Lis le schéma. Lis chaque ligne en reliant les quatre colonnes.
Une réponse efficace relie des cellules et des molécules aux fonctions distinctes.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionComment une comparaison avec retrait et réintroduction renseigne-t-elle l’aide des CD4 ?
Observations
- Dossier fictif sur une réponse à un antigène protéique A : mêmes B, mêmes cellules présentatrices, même durée et même viabilité dans toutes les conditions.
- La sortie est une quantité relative d’anticorps anti-A produits, en UA, et non un nombre de lymphocytes.
- Sans A mais avec CD4 compatibles : 0 UA ; avec A et CD4 : 100 UA ; avec A sans CD4 : 5 UA.
- Après réintroduction de CD4 compatibles dans une condition avec A : 90 UA. Les valeurs illustrent une comparaison et ne proviennent pas d’un prélèvement.
Hypothèses
- Dans ce dispositif, retirer les CD4 ne change pas la production anti-A.
- Les CD4 apportent une aide importante à la production anti-A étudiée.
Preuves à fournir
- 100 contre 5 UA montre une forte réduction lorsque les CD4 sont retirés.
- 90 UA après réintroduction se rapproche de 100 sans lui être identique.
- Le témoin sans A est à 0 UA : il ne montre pas de production anti-A dans ce modèle.
- La valeur 5 UA reste positive ; le dossier ne soutient pas une impossibilité absolue de production.
Analyse guidée
Le retrait diminue la sortie de 95 UA, soit 95 % de 100. La réintroduction l’augmente de 85 UA par rapport à la condition sans CD4, avec une restauration partielle à 90 % de la condition complète. Ces comparaisons soutiennent une contribution des CD4 à la réponse étudiée. Elles n’identifient pas à elles seules une cytokine précise, ne mesurent pas les CD8 et ne constituent pas un test de statut VIH.
Diagnostic d’erreur
Indice observéLa copie affirme que les CD4 sécrètent les 100 UA d’anticorps.
CauseL’acteur nécessaire à une coopération est confondu avec la cellule effectrice productrice.
Correction expliquée
Attribue la sécrétion aux plasmocytes issus des B et l’aide aux CD4. Le retrait d’un partenaire peut modifier la production d’un autre.
Étape du cours · 6 à 11 min
Relier mémoire, vaccination et perturbation de la coopération
Après une réponse adaptative, une partie des cellules sélectionnées persiste sous forme de cellules mémoire. Lors d’un nouveau contact avec un antigène reconnu, elles peuvent participer à une réponse plus rapide et plus importante. La mémoire concerne des reconnaissances particulières : un contact avec l’antigène A ne garantit pas une réponse secondaire à un antigène B distinct. Une réponse secondaire se définit donc par l’histoire de l’exposition et la spécificité, pas seulement par une courbe élevée.
Un dossier fictif compare des réponses à A et B, définis sans reconnaissance croisée dans le modèle. Sans contact préalable, une exposition à A donne un indice de réponse anti-A de 0,2 au jour 3 et de 1 au jour 7. Après un premier contact avec A, un nouveau contact avec A donne 2 puis 6. Après un contact préalable avec A, une première exposition à B donne une réponse anti-B de 0,2 puis 1 ; après un contact préalable avec B, une nouvelle exposition à B donne 2 puis 6. Les indices de réponse sont définis sur une même échelle pédagogique, pas comme des seuils de protection.
La vaccination vise à préparer une réponse spécifique et une mémoire immunitaire grâce à une présentation antigénique adaptée. Son principe se distingue d’un apport d’anticorps déjà fabriqués, qui constitue une immunité passive : les molécules apportées peuvent agir rapidement mais leur présence ne crée pas, à elle seule, des clones mémoire chez le receveur. Les modalités réelles, les rappels et la protection obtenue dépendent du vaccin et de la situation. Un modèle de réponse ne permet pas d’établir une prescription ou un calendrier vaccinal.
Le VIH, virus de l’immunodéficience humaine, atteint notamment les lymphocytes T CD4. C’est un rétrovirus : après son entrée dans une cellule cible, une transcriptase inverse copie son ARN en ADN ; cet ADN peut être intégré au génome cellulaire. La machinerie de la cellule permet alors la production de constituants viraux, assemblés en nouveaux virus qui bourgeonnent puis deviennent infectieux par maturation. La diminution des CD4 et les perturbations de leur fonctionnement peuvent fragiliser plusieurs réponses puisqu’ils participent à la coopération. L’infection par le VIH n’est pas synonyme de sida : le sida correspond à un stade avancé de l’infection. Les traitements antirétroviraux freinent la multiplication virale et protègent les fonctions immunitaires ; ils ne signifient pas une élimination de tous les réservoirs du virus.
Comprendre un mécanisme ne permet pas d’identifier une personne infectée à partir de son apparence, d’une fatigue ou d’une réaction de stress. Le VIH ne se transmet pas par une poignée de main, une étreinte ou le partage ordinaire de vaisselle. Un document sur la coopération cellulaire ne constitue pas un dépistage. Parler de cellules cibles et de voies de transmission précises aide à expliquer les faits sans classer les personnes ni leur attribuer un risque selon leur identité.
Compare enfin les deux formes de coordination étudiées. Le rétrocontrôle hormonal modifie l’activité de relais en retour et contribue à réguler une réponse ; la mémoire immunitaire conserve des populations capables de répondre différemment à un nouvel antigène reconnu. Les deux mobilisent cellules, messages et organes, mais leurs mécanismes et leurs preuves ne sont pas interchangeables. Une série de débits ne démontre pas une mémoire ; une réponse anti-A ne démontre pas un rétrocontrôle du cortisol. Un fonctionnement intégré se comprend en reliant des mécanismes identifiés, pas en attribuant tous les changements à une seule cause.
Voir pour comprendre
Tester la spécificité de la réponse
Indices fictifs de réponse à l’antigène testé, sans seuil de protection.
| Contact préalable | Antigène testé | Jour 3 | Jour 7 |
|---|---|---|---|
| Aucun | A : réponse anti-A | 0,2 | 1 |
| A | A : réponse anti-A | 2 | 6 |
| A | B : réponse anti-B | 0,2 | 1 |
| B | B : réponse anti-B | 2 | 6 |
Lis le schéma. Lis chaque ligne en reliant les quatre colonnes.
Le témoin avec un autre antigène distingue réponse générale et mémoire spécifique.
Exemples résolus et erreurs expliquées
Enquête scientifique
QuestionLa première exposition à A prépare-t-elle une réponse secondaire à n’importe quel antigène ?
Observations
- Modèle documentaire fictif : A et B sont distincts et sans reconnaissance croisée ; les conditions de lecture des indices sont identiques.
- Sans contact préalable, exposition à A : indice anti-A de 0,2 au jour 3 et de 1 au jour 7.
- Contact préalable A, puis A : anti-A = 2 puis 6. Contact préalable A, puis B : anti-B = 0,2 puis 1.
- Contact préalable B, puis B : anti-B = 2 puis 6. Ces valeurs ne mesurent ni une efficacité vaccinale ni une protection clinique.
Hypothèses
- Un premier contact accélère de la même façon toute réponse ultérieure, quel que soit l’antigène.
- La réponse renforcée dépend de la reconnaissance d’un antigène déjà rencontré dans ce modèle.
Preuves à fournir
- Au jour 3, la réponse à A après A est dix fois celle de la première réponse à A : 2/0,2 = 10.
- Au jour 7, le rapport correspondant vaut 6/1 = 6.
- Après A, la première réponse à B garde les valeurs 0,2 puis 1.
- La réponse à B est renforcée après un contact préalable avec B, ce qui fournit une comparaison de spécificité.
Analyse guidée
Le dossier soutient la seconde hypothèse. Le contact préalable avec A modifie la réponse à A, mais ne produit pas ici le même effet sur B ; B peut pourtant donner une réponse renforcée après B. Les rapports de 10 et 6 décrivent les instants indiqués, pas une protection multipliée par dix ni une réponse éternelle. Le dossier est compatible avec une mémoire spécifique et ne suffit pas à comparer des vaccins réels.
Diagnostic d’erreur
Indice observéUne réponse dix fois plus élevée est présentée comme une efficacité vaccinale de 1 000 %.
CauseUn rapport d’indices biologiques est transformé en réduction du risque de maladie.
Correction expliquée
Donne le rapport et le temps de lecture. Mesurer une efficacité demanderait des événements de santé et une comparaison adaptée, absents de ce dossier.
Poursuivre avec l’abonnement
Comprendre les communications dans l’organisme
Étudie le schéma, les sept cas corrigés et les grilles du cours.
Entraîne-toi avec les dossiers, l’atelier de données, les vingt et une questions et les vingt et une cartes.
21 questions · 21 cartes. La reprise de ce cours est enregistrée localement dans ton navigateur.
Voir les offres Déjà abonné ? Se connecterVérifier et prolonger
Sources du cours
Édition Maxdecours · Vérifié le .
Biologie-écologie · Terminale
- Programme de l’enseignement de spécialité de biologie-écologie de première et de terminale généraleChloroFil, Ministère de l’Agriculture et de la Souveraineté alimentaire · consulté le 2026-09-12
- Arrêté du 23 juillet 2019 fixant le programme de biologie-écologieLégifrance · consulté le 2026-09-08
- Cadrage de l'épreuve terminale de biologie-écologie à compter de la session 2024Bulletin officiel du ministère de l'Agriculture · consulté le 2026-09-08
- Arrêté du 19 juin 2026 sur le choix entre biologie-écologie et sciences de la vie et de la TerreLégifrance · consulté le 2026-09-08
- Évaluation des compétences expérimentales en biologie-écologieChloroFil, ministère de l'Agriculture · consulté le 2026-09-08
- Sujet zéro et grilles de l'épreuve écrite de biologie-écologieInspection de l'enseignement agricole, Chlorofil · consulté le 2026-08-21
- Cardiac Physiology, Anatomy and Physiology 2e, section 19.4OpenStax, Rice University · consulté le 2026-09-12
- Blood Flow, Blood Pressure, and Resistance, Anatomy and Physiology 2e, section 20.2OpenStax, Rice University · consulté le 2026-09-12
- Stress: Endocrine Physiology and Pathophysiology, mise à jour du 17 octobre 2020Tsigos, Kyrou, Kassi et Chrousos, Endotext, NCBI Bookshelf · consulté le 2026-09-12
- Lymphocytes and the Cellular Basis of Adaptive Immunity, Molecular Biology of the Cell, 4e édition, 2002Alberts et al., Garland Science, NCBI Bookshelf · consulté le 2026-09-12
- Summary to Chapter 9, Immunobiology, 5e édition, 2001Janeway, Travers, Walport et al., Garland Science, NCBI Bookshelf · consulté le 2026-09-12
- HIV and AIDS: The Basics, révision du 28 mai 2025NIH, HIVinfo · consulté le 2026-09-12
- The structure of a typical antibody molecule, Immunobiology, 5e édition, 2001Janeway, Travers, Walport et al., Garland Science, NCBI Bookshelf · consulté le 2026-09-12
- The HIV Life Cycle, révision du 9 avril 2025NIH, HIVinfo · consulté le 2026-09-12
© 2026 Maxdecours.com · Comprendre et progresser